Galektiinilla-3 on antinekroptoottisia ja apoptoottisia vaikutuksia sisplatiinin aiheuttamassa akuutissa tubulusnekroosissa
Mar 17, 2022
Ota yhteyttä: ali.ma@wecistanche.com
Suhail Al-Salama et ai
Cistanche tubulosa -annos munuaissairaudelle, napsauta tästä saadaksesi näytteen
Abstrakti
Tausta/Tavoitteet:Akuuttimunuainenvamma (AKI) on kansanterveystaakka, joka lisää sairastuvuutta, kuolleisuutta ja terveydenhuoltokustannuksia. Se liittyy lisääntyneeseen kroonisten sairauksien kehittymisen riskiinmunuainensairaus ja kuolema. Akuutti tubulusnekroosi (ATN) on yleisin AKI:n syy. Apoptoosilla ja kudosnekroosilla on tärkeä rooli ATN:ssä. Galektiini 3:lla (GAL-3), beeta-galaktosideja sitovalla lektiinillä, tiedetään vaikuttavan tulehdukseen, apoptoosiin ja oksidatiiviseen stressiin, mutta sen roolia sisplatiinin aiheuttamassa akuutissa tubulusnekroosissa ei ole selkeästi selvitetty.
Menetelmät:Urospuolisia C57B6-J- ja C57BL-6 –GAL-3-poistohiiriä käytettiin ATN:n indusoimiseen käyttämällä akuutin tubulusnekroosin sisplatiinihiirimallia. GAL-3 ilmentymistä, apoptoottisia, nekroottisia ja nekrotoottisia proteiinejamunuaisetmitattiin käyttämällä tavanomaisia histologisia, immunohistokemiallisia ja entsyymikytkettyjä immunosorbenttimääritystekniikoita. Tiedot esitettiin keskiarvona ± SE Tilastollisesti merkitsevät erot (s<0.05) were="" calculated="" between="" experimental="" groups="" and="" corresponding="" control="" groups="" by="" one-way="" analysis="" of="">
Tulokset:GAL{0}} kasvoi merkittävästimunuaisetsisplatiinilla hoidetuista villihiiristä GAL-3 verrattuna sen kontrollihiiriin. Lisäksi ATN:n prosenttiosuudet, plasman urea- ja kreatiniinipitoisuudet sekä katepsiini B- ja katepsiini D-tasot olivat huomattavasti korkeammat.munuaisetsisplatiinilla hoidetuista GAL-3 KO-hiiristä kuin sisplatiinilla hoidetuista GAL-3-villihiiristä. Samoin nekroptoosiproteiinien RIPK1, RIPK3 ja MLKL tasot olivat merkittävästi korkeammatmunuaisetsisplatiinilla hoidetuista GAL-3 KO-hiiristä kuin sisplatiinilla hoidetuista GAL-3-villihiiristä. Lisäksi tasoja oli huomattavasti korkeampimunuainenpro-apoptoottiset proteiinit; pilkottu kaspaasi-3, pilkottu PARP, TRAIL ja FAS sisplatiinilla käsitellyissä GAL-3 KO-hiirissä verrattuna sisplatiinilla käsiteltyihin GAL-3-villihiiriin.
Johtopäätös:GAL-3 voi vaikuttaa solujen eloonjäämiseen ja kuolemaan vuorovaikutuksessa nekroptoottisten, apoptoottisten ja eloonjäämistä edistävien proteiinien kanssa munuaistiehyissä sisplatiinin aiheuttaman akuutin tubulusnekroosin aikana.
Avainsanat: Munuainen• Akuutti tubulusnekroosi • Sisplatiini • Galektiini-3 • Nekroptoosi • Apoptoosi
Johdanto
Akuuttimunuainenvamma (AKI) on ominaista äkillinen väheneminenmunuainentoiminta perustuu seerumin kreatiniinitason nousuun, virtsan erittymisen vähenemiseen, munuaiskorvaushoidon tarpeeseen tai näiden tekijöiden yhdistelmään [1].
TheMunuainenDisease Improving Global Outcome (KDIGO) AKI:n kliinisen käytännön ohjeissa AKI määritellään joko seerumin kreatiniinin nousuksi, joka on suurempi tai yhtä suuri kuin 0,3 mg/dl (suurempi tai yhtä suuri kuin 26,5 µmol/l) 48 tuntia; tai seerumin kreatiniinin nousu 1,5-kertaiseksi tai suuremmaksi kuin lähtötaso, jonka tiedetään tai oletetaan tapahtuneen viimeisten 7 päivän aikana; tai virtsan määrä<0.5 ml/kg/h="" for="" 6="" hours="">
Akuutti tubulusnekroosi (ATN) on yleinen AKI:n syy [3]. Iskeemiset ja nefrotoksiset rikokset ovat ATN:n tärkeimmät syyt [3]. Huolimatta laajoista ATN-tutkimuksista, joihin kuuluvat soluvauriot, solukuolema ja regeneraatio, taustalla olevia mekanismeja ei ole selkeästi määritelty.
Apoptoosi on kaspaasien välittämä ohjelmoidun solukuoleman muoto. Merkittävät raportit ovat osoittaneet, että apoptoosilla on tärkeä rooli ATN:ssä [3, 4]. Toisaalta nekroosi on solukuoleman muoto, jolle on tunnusomaista varhainen plasmakalvon läpäisy, organellien turpoaminen ja solusisällön hajoaminen [5]. Nekroosia esiintyy usein, kun solut altistetaan liialliselle ulkoiselle stressille. Nekroosia on perinteisesti pidetty passiivisena ja ohjelmoimattomana; Tästä syystä nekroosin mekanismin tutkimiseksi oli tehty vain vähän yrityksiä huolimatta sen esiintyvyydestä ihmisten sairauksissa [5]. Hyvin tunnettu nekroosityyppi on nekroptoosi [5]. Necroptoosi on ohjelmoitu ei-apoptoottinen solukuolema, joka on indusoitu useiden solunulkoisten ärsykkeiden, kuten tuumorinekroositekijän (TNF) [5]. Se määriteltiin alun perin solukuolemaksi, jolle on tunnusomaista nekroottinen solukuoleman morfologia ja samanaikainen reseptorin kanssa vuorovaikutteisen seriini/treoniiniproteiinikinaasi 1:n (RIPK1) aktivaatio. RIPK1 aktivoi reseptoriin vuorovaikutteisen seriini/treoniiniproteiinikinaasi 3:n (RIPK3) muodostaen kompleksin, jota kutsutaan nekrosomiksi [6]. Myöhemmin aktivoitu RIPK3 saa kyvyn fosforyloida ja aktivoida MLKL:n [6]. Fosforyloidut MLKL-molekyylit pystyvät muodostamaan oligomeerejä helpottamaan niiden siirtymistä solukalvoon sitoutumalla fosfatidyyli-inositolilipideihin ja kardiolipiiniin. Siirretyt MLKL-oligomeerit toimivat kanavina solukalvossa indusoidakseen joko natriumin sisäänvirtauksen ja kalium-ionien ulosvirtauksen [7] tai vaihtoehtoisesti kalsiumionien sisäänvirtauksen [8]. Molemmilla tavoilla tämä johtaa nekroottiseen solukuolemaan plasmakalvon läpäisyn ja repeämisen kautta, mikä johtaa solunsisäisen sisällön vuotamiseen elimeen.
Tässä projektissa olemme käyttäneet sisplatiinia (Cis) akuutin tubulusnekroosin aiheuttamiseen. Cis:llä on laaja valikoima kasvainten vastaisia vaikutuksia, ja sitä on käytetty erilaisten pahanlaatuisten kasvainten hoitoon [9]. Siitä huolimatta munuaistoksisuus on tärkein sivuvaikutus, ja sille on ominaista munuaisten tubulussolunekroosi, kudosvaurio, munuaisten vajaatoiminta ja akuuttimunuainenepäonnistuminen [10]. Huolimatta erilaisista toimenpiteistä, joita on toteutettu munuaisvaurion voittamiseksi, lähes 4–23 prosenttia potilaista kärsii AKI:stä [11]. Sisplatiinin aiheuttaman munuaisvaurion tunnettuja mekanismeja ovat apoptoosi, oksidatiivinen stressi ja munuaistiehyiden epiteelisolujen ja munuaissuonien suorasta vauriosta johtuva tulehdusvaste [12].
Galektiini-3 (GAL-3), 35 kDa:n proteiini, on ainutlaatuinen kimeeran kaltainen proteiini, jolla on yksi C-terminaalinen hiilihydraatin tunnistusdomeeni (CRD) yhdistettynä pitkään N-terminaaliseen domeeniin (ND) [13 ].GAL-3 löytyy solun pinnasta, sytoplasmasta ja solujen tumasta sekä solunulkoisesta matriisista [13].
Solunsisäinen GAL{0}} on osallistunut solujen lisääntymiseen ja anti-apoptoottisiin mekanismeihin [14, 15]. Se vaikuttaa K-Ras- ja Akt-proteiineihin ja säätelee siten myös erilaistumisen eloonjäämistä ja kuolemaa [14, 15]. Solunulkoinen GAL-3 välittää solujen välistä adheesiota, solu-matriisivuorovaikutusta ja signalointia, tulehdusta ja apoptoosia [16].
GAL-3:n on osoitettu siirtyvän joko sytosolista tai ytimestä mitokondrioihin apoptoottisille ärsykkeille altistumisen jälkeen ja estävän muutoksia mitokondrioiden kalvopotentiaalissa, mikä estää apoptoosia [17]. Tutkimukset ovat myös osoittaneet, että GAL-3 voi estää TNF:n aiheuttamaa apoptoosia AKT:n aktivoinnin kautta [18]. Muut tutkimukset ovat osoittaneet, että GAL-3 ja Beclin1 osallistuvat kahteen koordinoituun ohjelmoidun solukuoleman, apoptoosin ja autofagian reittiin [18]. Tässä projektissa oletamme, että GAL-3 suojaa munuaisten tubulusepiteeliä akuutissa tubulusvauriossa. Olemme käyttäneet akuutin tubulusvaurion hiiren mallia tutkiaksemme GAL-3:n suojaavaa roolia sisplatiinin aiheuttamassa akuutissa tubulusvauriossa mittaamalla munuaisten toimintaa (plasman urea ja kreatiniini),munuainennekroptoosiproteiinit (RIP-1, RIP-3 ja MLKL), nekroosiproteiinit (katepsiini D ja katepsiini B), apoptoosiproteiinit (katkottu kaspaasi-3, pilkottu PARP, TRAIL ja FAS) ja solujen eloonjäämismarkkereita (p-NF-κB, beeta-kateniini ja Wnt) käyttämällä tavanomaista entsyymi-immunosorbenttimääritystä, biokemiallista analysaattoria, histologisia ja immunohistokemiallisia menetelmiä.

Materiaalit ja menetelmät
Olemme käyttäneet akuutin hiiren kokeellista malliamunuainenvamma, jota on kuvattu laajasti kirjallisuudessa ja jota on käytetty akuutin tutkimiseenmunuainenvammoja laboratorioissa maailmanlaajuisesti [19].
Akuutin tubulusnekroosin hiirimalli
Käytettiin C57BL/6 ja C57BL/6 –GAL-3 knock-out (KO) -hiiriä, jotka painoivat 25-30 g. Hiiriä pidettiin normaalilla ruokavaliolla. Hiiriä pidettiin viisi per häkki 12-h valon ja pimeyden aikataulun mukaisesti vähintään 1 viikon ajan ennen sisplatiinin antamista.
Sisplatiinia (EBEWE Pharma GmbH Nfg. KG, Unterach, ITÄVALTA) käytettiin juuri antopäivänä pitoisuutena 0,5 mg/ml. Hiirille annettiin joko 30 mg/kg ruumiinpainoa sisplatiinia [11] tai vehikkeliä (normaali suolaliuos) intraperitoneaalisesti (IP), minkä jälkeen hiirillä oli jälleen vapaa pääsy ruokaan ja veteen. Eutanasia aloitettiin anestesialääkkeiden intraperitoneaalisella injektiolla, joka sisälsi ketamiinin (100 mg/kg) ja ksylatsiinin (10 mg/kg) yhdistelmän, jonka jälkeen munuaiset poistettiin ja verinäytteitä otettiin 96 tuntia sisplatiinin annon jälkeen. Veri kerättiin EDTA-vacutainers.Munuaisetsitten resektoitiin, pestiin jääkylmässä fosfaattipuskuroidussa suolaliuoksessa (PBS), puolikas kustakin munuaisesta jäädytettiin välittömästi nestetypessä ja säilytettiin myöhemmin -80 asteen pakastimessa. Toinen puolikas kiinnitettiin välittömästi 10-prosenttiseen puskuroituun suolaliuokseen 24 tunnin ajan. Kerättyä verta sentrifugoitiin nopeudella 3000 rpm 15 minuuttia. Plasma kerättiin, jaettiin eriin ja säilytettiin -80 asteessa lisäanalyysiin asti.
Näytteenkäsittely proteiinien uuttamista varten
Kokonaisproteiini uutettiinmunuainennäytteet homogenoimalla lyysipuskurilla ja keräämällä supernatantti sentrifugoinnin jälkeen. Kokonaissolulysaattia varten munuaisnäytteet sulatettiin, punnittiin ja laitettiin kylmään lyysipuskuriin, joka sisälsi 5{{20}} mM Tris, 300 mM NaCl, 1 mM MgCl2, 3 mM EDTA, 20 mM -glyserofosfaatti, 25 mM NaF, 1 % Triton X-100, 10 % w/v glyserolia ja proteaasi-inhibiittoria tabletti (Roche Complete proteaasi-inhibiittori cocktailtabletit). Munuaiset homogenisoitiin jäillä homogenisaattorilla (IKA T25 Ultra Turrax). Näytteitä sentrifugoitiin sitten 14000 RPM:ssä 15 minuuttia 4 asteessa, supernatantti kerättiin, jaettiin eriin ja säilytettiin -80 asteessa jatkoanalyysiin asti. Ydin- ja sytoplasminen proteiiniuutto tehtiin noudattaen muualla kuvattua protokollaa [19]. Lyhyesti sanottuna munuaisnäytteet sulatettiin jäillä, punnittiin ja homogenoitiin jäillä puskurilla, joka sisälsi Tris HCl 10 mmol/l, CaCl2 3 mmol/l, MgCl2 2 mmol/l, EDTA 0,1 mmol/l. , fenyylimetaanisulfonyylifluoridi (PMSF) 0,5 mmol/l, sakkaroosi 0,32 mmol/l, ditiotreitoli (DTT) 1 mmol/l, Nonidet P-40 (NP-40) 0,5 prosenttia ja proteaasi-inhibiittoricocktail 1 prosentti. Homogenaatteja sentrifugoitiin nopeudella 800 rpm 10 minuuttia. Supernatantti poistettiin ja pidettiin sytoplasmisina fraktioina. Pelletti pestiin kahdesti homogenisointipuskurilla ilman NP-40 ja suspendoitiin uudelleen vähäsuolaista puskuria, joka sisälsi HEPES 20 mmol/l, MgCl2 1,5 mmol/l, KCl 20 mmol/l, EDTA 0,2 mmol /l. Glyseroli 25 prosenttia, PMSF 0,5 mmol/l ja DTT 0,5 mmol/l. 5 minuutin jäillä inkuboinnin jälkeen sama tilavuus runsaasti suolaa sisältävää puskuria, joka sisältää HEPES 20 mmol/l, MgCl2 1,5 mmol/l, KCl 800 mmol/l, EDTA 0,2 mmol/l. Lisättiin glyserolia 25 prosenttia, PMSF:ää 0,5 mmol/l, DTT:tä 0,5 mmol/l, NP-40 1 prosenttia ja proteaasi-inhibiittoriseosta 1 prosenttia, seosta inkuboitiin jäillä 30 minuuttia, sentrifugoitiin nopeudella 14 000 RPM 15 minuuttia. minuuttia 4 asteessa, ja supernatantit tallennettiin ydinfraktiona. Proteiinin kokonaispitoisuus määritettiin BCA-proteiinimääritysmenetelmällä (Thermo Scientific Pierce BCA Protein Assay Kit).
Näytteenkäsittely histologiaa varten
Munuaiset leikattiin pois, pestiin jääkylmällä PBS:llä ja punnittiin. Jokainenmunuainenjaettiin kahteen puolikkaaseen, ja kumpikin puolisko oli kasetti ja kiinnitettiin suoraan 10-prosenttisessa puskuroidussa formaliinissa. Leikkeet dehydratoitiin kasvavilla etanolipitoisuuksilla, kirkastettiin ksyleenillä ja upotettiin parafiinilla. Kolmen µm:n leikkeitä valmistettiin parafiinilohkoista ja värjättiin hematoksyliini- ja eosiini- ja perjodihappo-Schiff (PAS) -väreillä käyttäen standardimenetelmiä [20]. Tähän projektiin osallistunut histopatologi arvioi värjätyt leikkeet.
Immunohistokemia
Viiden um:n leikkeistä tehtiin parafiini ksyleenillä ja hydratoitiin uudelleen gradoidulla alkoholilla. Leikkeet asetettiin sitten korkean pH:n (pH 9) Retrieval Solution -liuokseen vesihauteeseen 95 oC:ssa 20 minuutiksi. Leikkeet pestiin sitten tislatulla vedellä 5 minuutin ajan ja sen jälkeen TBST-puskurilla 5 minuutin ajan. Sitten leikkeitä käsiteltiin peroksidaasin estoksella 10 minuuttia, mitä seurasi proteiinisalpaus 10 minuutin ajan. Leikkeitä inkuboitiin sitten tunnin ajan huoneenlämmössä katkaisua estävän kaspaasi-3-vasta-aineen (Rabbit Polyclonal, 1:300, Cell signaling Technology, Danvers, MA USA) kanssa, katkaisua estävän PARP-vasta-aineen (Rabbit Polyclonal, 1:) kanssa. 100, Cell signaling Technology, Danvers, MA, USA), beeta-kateniinivasta-aine (Rabbit Polyclonal, 1:100, Abcam, Cambridge, MA, USA), anti-fosfo-NF-KB-vasta-aine (Rabbit Polyclonal, 1: 100, Abcam, Cambridge, MA, USA), anti-Wnt-3 (Rabbit Polyclonal, 1:100, Abcam, Cambridge, MA, USA), anti-RIPK1 (Rabbit polyclonal, 1:100, Thermo Scientific, Waltham, MA, USA), anti-RIPK3 (Rabbit polyclonal, 1:100, Thermo Scientific, Waltham, MA, USA) ja anti-MLKL 1 (Rabbit monoclonal, 1:100, Thermo Scientific, Waltham, MA, USA) . Primääristen vasta-aineiden kanssa konjugaation jälkeen leikkeitä inkuboitiin sekundaarisen vasta-aineen kanssa (EnVisionTM Detection System, DAKO, Agilent, USA) 20 minuuttia huoneenlämmössä, minkä jälkeen lisättiin DAB-kromogeenia (EnVisionTM Detection System, DAKO, Agilent, Santa Clara, CA, USA) ja vastavärjäys tehtiin hematoksyliinillä. Käytettiin asianmukaisia positiivisia kontrolleja. Negatiivista kontrollia varten primääristä vasta-ainetta ei lisätty leikkeihin. Positiivisia ja negatiivisia kontrolleja käytettiin jokaisessa värjättyjen objektilasien erässä (ei esitetty kuvissa).
Immunofluoresoiva leimaus
Viiden μm:n leikkeistä tehtiin parafiini ksyleenillä ja hydratoitiin uudelleen gradoidulla alkoholilla. Leikkeet asetettiin Retrieval Solution -liuokseen, jonka pH oli korkea (pH 9), vesihauteeseen 95 asteessa 20 minuutiksi. Leikkeet pestiin sitten tislatulla vedellä 5 minuutin ajan ja sen jälkeen TBST-puskurilla 5 minuutin ajan. Sitten leikkeitä inkuboitiin anti-GAL-3-vasta-aineella (Rabbit Polyclonal, 1:50, Santa Cruz Biotechnology, Dallas, Texas, USA), anti-RIPK1:llä (Rabbit polyclonal, 1:50, Thermo Scientific, Thermo Scientific, Waltham, MA, USA), anti-RIPK3 1 (Rabbit polyclonal, 1:50, Thermo Scientific, Thermo Scientific, Waltham, MA, USA) ja anti-MLKL 1 (Rabbit monoklonaalinen, 1:50, Thermo Scientific, Thermo Scientific, Waltham, MA, USA) yön yli huoneenlämpötilassa. Tämän jälkeen leikkeitä inkuboitiin aasin anti-kani Alexa Fluor 488, (Jackson Immune Research Laboratories, Bar Harbor, Maine, USA, 1:100) vasta-aineen kanssa. Lopuksi osat kiinnitettiin DAPI-vesiliukoisiin asennusvälineisiin (Abcam, Cambridge, MA, USA) ja niitä tarkasteltiin Olympus Fluorescent -mikroskoopilla. Käytettiin asianmukaisia positiivisia kontrollileikkeitä. Negatiivista kontrollia varten primääristä vasta-ainetta ei lisätty leikkeihin ja koko menettely suoritettiin samalla tavalla kuin edellä mainittiin. Positiivisia ja negatiivisia kontrolleja käytettiin jokaisessa värjättyjen objektilasien erässä (ei esitetty kuvissa).
Morfometrinen analyysi
Kaksi tähän tutkimukseen osallistuvaa tutkijaa teki akuutin tubulusnekroosin morfometrisen analyysin. Katkaistun kaspaasin-3, katkaistun PARP:n, RIPK1:n, RIPK3:n, MLKL:n, fosfo-NFK-B:n, Wnt-3, beeta-kateniinin, ilmentymisen munuaistiehyissä soluissa morfometrinen analyysi tehtiin ImageJ-ohjelmistolla (http: //rsbweb.nih.gov/ij/). Pilkottu kaspaasi-3, pilkottu PARP, RIPK1, RIPK3, MLKL, fosfo-NFK-B, Wnt-3, beeta-kateniini, leimaus määritettiin laskemalla positiivisten solujen lukumäärä satunnaisesti valitussa suuressa tehossa kentät (HPF) munuaisissa. Positiivisten solujen keskimääräiset määrät muunnetaan HPF:stä per mm2 (Jokainen mm{16}}HPF). Katkaistun kaspaasin-3, katkaistun PARP:n, RIPK1:n, RIPK3:n ja Wnt-3 merkitsemisen osalta solut otettiin huomioon
positiivinen, kun oli sytoplasminen värjäytymiskuvio. MLKL-leimausta varten soluja pidettiin positiivisina, kun niissä oli kalvomainen ja sytoplasminen värjäyskuvio. Fosfo-NFK-B:n ja beeta-kateniinin leimauksessa soluja pidettiin positiivisina, kun tumavärjäytyskuvio oli.
Entsyymi-immunosorbenttimääritys
MunuainenGAL-3, katepsiini D:n, katepsiini B:n, pilkkoutuneen kaspaasin-3, TRAILin ja FAS:n pitoisuudet määritettiin käyttämällä DuoSet-entsyymikytkentäistä immunosorbenttimääritystä (ELISA) kehityspakkausta (R&D Systems, Minneapolis, MN, USA) ) sandwich-ELISA:a varten käyttäen vakiomenettelyä valmistajan ohjeiden mukaisesti. Munuaisista pilkkoutuneiden PARP-pitoisuudet määritettiin käyttämällä Solusignalointiteknologia Elisa -kittiä (Danvers, MA, USA) sandwich Elisaa varten käyttäen standardimenettelyä valmistajan ohjeiden mukaisesti. Munuaisten RIPK1-, RIPK3- ja MLKL-pitoisuudet määritettiin käyttämällä MyBioSource (San Diego, CA, USA) Elisa-sarjan sandwich Elisa -pakkauksia käyttäen vakiomenettelyä valmistajan ohjeiden mukaisesti. Absorbanssilukemat tehtiin 450 nm:ssä käyttämällä 96-kuoppalevyspektrofotometriä (BioTek ELx800 microplate Elisa Reader, Winooski, VT, USA). GAL-3, katepsiini D, katepsiini B, pilkottu kaspaasi-3, TRAIL, RIPK1, RIPK3, MLKL, pilkottu PARP- ja FAS-pitoisuudet munuaisnäytteistä määritettiin interpoloimalla standardikäyrästä. Tasot normalisoitiin kokonaisproteiinikonsentraatioihin.
Tilastollinen analyysi
Kaikki tilastolliset analyysit suoritettiin käyttämällä Graph Pad Prism -ohjelmiston versiota 5. Useita vertailuja eri ryhmien välillä saavutettiin yksisuuntaisella varianssianalyysillä (ANOVA), mitä seurasi Newman Keulsin post hoc -monivälitestit. Kahden ryhmän vertailu tehtiin Studentin t-testillä. Tiedot esitetään keskiarvona ± standardivirhe (SE). P-arvoja < 0,05="" pidetään="">
Tulokset
Sisplatiinin aiheuttama akuutti tubulusnekroosi
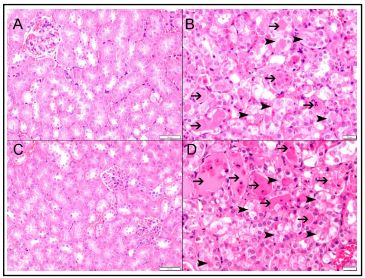
Sisplatiinilla käsitellyssä villiryhmässä GAL-3 näkyy ATN, johon liittyy (67,29 prosenttia ± 2,392) munuaisten parenkyymaa (kuva 1) ja harjan reunojen menetystä, tubulussolujen turvotusta, putoavia soluja, intratubulaarisia eritteitä ja mitoosia ( kuviot 2B ja 3B).
Sisplatiinilla käsitellyssä GAL-3 KO -ryhmässä näkyy ATN, johon liittyy (78,54 prosenttia ± 0.8120) munuaisparenkyymaa (kuva 1) ja harjan reunojen häviämistä, tubulussolujen turvotusta, putoavia soluja, intratubulaariset eritteet ja mitoosi (kuvio 2D ja 3D).
ATN:n prosenttiosuus on huomattavasti suurempimunuaisetsisplatiinilla hoidetuissa GAL-3 KO-hiirissä kuin sisplatiinilla hoidetuissa GAL-3 villihiirissä (P<0.002) (fig.="">
GAL-3 ilmenee akuutissa tubulusnekroosissa
GAL-3:n sytoplasmafraktiopitoisuus on lisääntynyt merkittävästimunuaisetsisplatiinilla hoidetussa GAL-3-villiryhmässä (6084 ± 587,3 pg/mg) verrattuna GAL-3-villikontrolliryhmään (1620 ± 62,3 pg/mg), (P<0.001), (fig.="" 4e).="" there="" is="" a="" significant="" increase="" in="" the="" nuclear="" fraction="" concentration="" of="" gal-3="" in="">munuaisetsisplatiinilla käsitellyssä GAL-3 -villissä
ryhmässä (841,8 ± 41,11 pg/mg) verrattuna GAL-3 villikontrolliryhmään (429,2 ± 39,56 pg/mg), (P<0.001), (fig.="" 4e).="" multiple="" comparisons="" between="" the="" four="" experimental="" groups="" using="" one-way="" anova,="" followed="" by="" newman-keuls="" post="" hoc="" test="" were="" statistically="" significant=""><>

Edustajan immunofluoresoiva värjäysmunuainenon osoittanut merkittävästi korkeamman GAL-3:n ilmentymisen akuutin tubulusnekroosin saamissa munuaistiehyissä (kuvat 4B-D) verrattuna villiin GAL-3 -kontrollihiiriin (kuvio 4A).

GAL-3 on antinekroptoottinen välittäjä
Reseptorien kanssa vuorovaikuttava seriini/treoniiniproteiinikinaasi 1 (RIPK1). RIPK-1-pitoisuus nousi merkittävästi (55,33 ± 3,766 pg/mg)munuaisetsisplatiinilla hoidetuista villihiiristä GAL-3 verrattuna villiin GAL-3 -kontrollihiiriin (14,22 ± 1,687 pg/mg), (P<0.001), (fig.="" 5a).="" there="" was="" a="" significant="" increase="" in="" ripk-1="" concentration="" (159.7="" ±="" 4.183="" pg/mg)="" in="" kidneys="" of="" cisplatin-treated="" gal-3="" ko="" mice="" when="" compared="" with="" gal-3="" ko="" control="" mice="" (39.59="" ±="" 1.808="" pg/mg),=""><0.001), (fig.="" 5a).="" there="" was="" a="" significantly="" higher="" concentration="" of="" ripk-1="" (159.7="" ±="" 4.183="" pg/mg)="" in="" kidneys="" of="" cisplatin-treated="" gal-3="" ko="" mice="" than="" in="" cisplatin-treated="" gal-3="" wild="" mice="" (55.33="" ±="" 3.766="" pg/mg),=""><0.001), (fig.="">
Useat vertailut neljän koeryhmän välillä käyttäen yksisuuntaista ANOVAa, jota seurasi Newman-Keulsin post hoc -testi, olivat tilastollisesti merkitseviä (P<>
Immunohistokemiallinen värjäys RIPK-1:lle osoitti merkittävästi enemmän soluja, jotka ilmensivät RIPK-1:amunuaisetsisplatiinilla hoidetuista GAL-3 KO-hiiristä kuin sisplatiinilla hoidetuista GAL-3 villihiiristä (P<0.001), (fig.="">
Reseptorien kanssa vuorovaikuttava seriini/treoniiniproteiinikinaasi 3 (RIPK3). RIPK-3-pitoisuus (616,4 ± 27,07 pg/mg) lisääntyi merkittävästi sisplatiinilla käsiteltyjen villihiirten GAL-3 munuaisissa verrattuna GAL-3-villikontrollihiiriin (17,46 ± 27,07 pg/mg) 7,002 pg/mg), (P<0.001), (fig.="" 5b).="" there="" was="" a="" significant="" increase="" in="" ripk-3="" concentration="" (2165="" ±="" 73.29="" pg/mg)="" in="" kidneys="" of="" cisplatin-treated="" gal-3="" ko="" mice="" when="" compared="" with="" gal-3="" ko="" control="" mice="" (203.1="" ±="" 6.443="" pg/mg),=""><0.001), (fig.="" 5b).="" there="" was="" a="" significantly="" higher="" concentration="" of="" ripk-3="" (2165="" ±="" 73.29="" pg/mg)="" in="">munuaisetsisplatiinilla hoidetuista GAL-3 KO-hiiristä kuin sisplatiinilla hoidetuista GAL-3 villihiiristä (616,4 ± 27,07 pg/mg), (P<0.001), (fig.="">
Immunohistokemiallinen värjäys RIPK-3:lle osoitti, että sisplatiinilla käsiteltyjen GAL-3 KO-hiirten munuaisissa oli merkittävästi enemmän RIPK-3-proteiinia ekspressoivia soluja kuin sisplatiinilla käsiteltyjen GAL-3-villihiirten ( P<0.001), (fig.="" 7).="" multiple="" comparisons="" between="" the="" four="" experimental="" groups="" using="" one-way="" anova,="" followed="" by="" newman-keuls="" post="" hoc="" test="" were="" statistically="" significant=""><>

Mixed lineage kinase domain-like (MLKL). MLKL-pitoisuus nousi merkittävästi (71,46 ± 1,757 pg/mg)munuaisetsisplatiinilla hoidetuista GAL-3-villihiiristä verrattuna GAL-3-villikontrollihiiriin (23,30 ± 0,5897 pg/mg), (P<0.001), (fig.="" 5c).="" there="" was="" a="" significant="" increase="" in="" mlkl="" concentration="" (160.3="" ±="" 6.648="" pg/mg)="" in="" kidneys="" of="" cisplatin-treated="" gal-3="" ko="" mice="" when="" compared="" with="" gal-3="" ko="" control="" mice="" (40.30="" ±="" 1.090="" pg/mg),=""><0.001), (fig.="" 5c).="" there="" was="" a="" significantly="" higher="" concentration="" of="" mlkl="" (160.3="" ±="" 6.648="" pg/mg)="" in="" kidneys="" of="" cisplatin-treated="" gal-3="" ko="" mice="" than="" in="" cisplatin-treated="" gal-3="" wild="" mice="" (71.46="" ±="" 1.757="" pg/mg),=""><0.001), (fig.="" 5c).="" immunohistochemical="" staining="" for="" mlkl="" showed="" a="" significantly="" higher="" number="" of="" cells="" expressing="" mlkl="" in="" kidneys="" of="" cisplatin-treated="" gal-3="" ko="" mice="" than="" cisplatin-treated="" gal-3="" wild="" mice=""><0.001), (fig.="" 8).="" multiple="" comparisons="" between="" the="" four="" experimental="" groups="" using="" one-way="" anova,="" followed="" by="" newman-keuls="" post="" hoc="" test="" were="" statistically="" significant=""><>

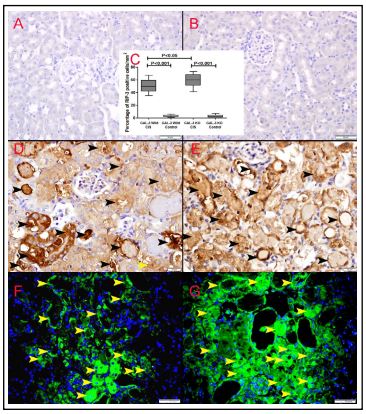
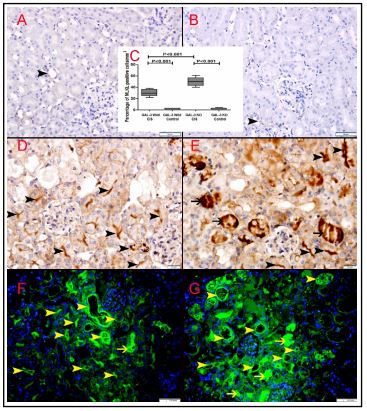
Katepsiini B. Katepsiini-B:n pitoisuus nousi merkittävästi vuonnamunuaisetsisplatiinilla hoidetuista GAL-3-villihiiristä (55,79 ± 4,141 pg/mg) verrattuna GAL-3-villikontrollihiiriin (37,99 ± 1,206 pg/mg), (P<0.05), (fig.="" 9a).="" there="" was="" a="" significant="" increase="" in="" cathepsin-b="" concentration="" in="">munuaisetsisplatiinilla hoidetuista GAL-3 KO-hiiristä (85,87 ± 9,220 pg/mg verrattuna GAL-3 villikontrollihiiriin (32,81 ± 1,570 pg/mg), (P<0.001), (fig.="" 9a).="" there="" was="" a="" significantly="" higher="" concentration="" of="" cathepsin-b="" in="" kidneys="" of="" cisplatin-treated="" gal-3="" ko="" mice="" (85.87="" ±="" 9.220="" pg/mg="" than="" cisplatin-treated="" gal-3="" wild="" mice="" (55.79="" ±="" 4.141="" pg/mg),=""><0.001), (fig.="">
Useat vertailut neljän koeryhmän välillä käyttäen yksisuuntaista ANOVAa, jota seurasi Newman-Keulsin post hoc -testi, olivat tilastollisesti merkitseviä (P<>
Katepsiini-D. Katepsiini-D-pitoisuus nousi merkittävästi vuonnamunuaisetsisplatiinilla hoidetuista GAL-3-villihiiristä (5145 ± 286,1 pg/mg) verrattuna GAL-3-villikontrollihiiriin (4066 ± 107,7 pg/mg), (P<0.05), (fig.="" 9b).="" there="" was="" a="" significant="" increase="" in="" cathepsin-d="" concentration="" in="">munuaisetsisplatiinilla hoidetuista GAL-3 KO-hiiristä (6695 ± 587,7 pg/mg) verrattuna GAL-3-villikontrollihiiriin (3914 ± 87,51 pg/mg), (P<0.001), (fig.="" 9b).="" there="" was="" a="" significantly="" higher="" concentration="" of="" cathepsin-d="" in="" kidneys="" of="" cisplatin-treated="" gal-3="" ko="" mice="" (6695="" ±="" 587.7="" pg/mg)="" than="" cisplatin-treated="" gal-3="" wild="" mice="" (4066="" ±="" 107.7="" pg/mg),=""><0.01), (fig.="">
Useat vertailut neljän koeryhmän välillä käyttäen yksisuuntaista ANOVAa, jota seurasi Newman-Keulsin post hoc -testi, olivat tilastollisesti merkitseviä (P<>
GAL-3 on anti-apoptoottinen välittäjä
Pilkottu kaspaasi-3. Pilkkotun kaspaasin-3 pitoisuus (4665 ± 330,9 pg/mg) nousi merkittävästimunuaisetsisplatiinilla hoidetuista villihiiristä GAL-3 verrattuna villiin GAL-3 -kontrollihiiriin (3193 ± 75,30 pg/mg), (P<0.05), (fig.="" 10a).="" there="" was="" a="" significant="" increase="" in="" cleaved="" caspase-3="" concentration="" (6319="" ±="" 686="" pg/mg)="" in="" the="" kidneys="" of="" cisplatin-treated="" gal-3="" ko="" mice="" when="" compared="" with="" gal-3="" ko="" control="" mice="" (3022="" ±="" 78.57="" pg/mg),=""><0.001), (fig.="" 10a).="" there="" was="" a="" significantly="" higher="" concentration="" of="" cleaved="" caspase-3="" (6319="" ±="" 686="" pg/mg)="" in="" the="" kidneys="" of="" cisplatin-treated="" gal-3="" ko="" mice="" than="" in="" cisplatin-treated="" gal-3="" wild="" mice="" (4665="" ±="" 330.9="" pg/mg),=""><0.01), (fig.="" 10a).="" multiple="" comparisons="" between="" the="" four="" experimental="" groups="" using="" one-way="" anova,="" followed="" by="" newman-keuls="" post="" hoc="" test="" were="" statistically="" significant=""><>
Immunohistokemiallinen värjäys pilkotulle kaspaasille-3 osoitti merkittävästi enemmän apoptoottisia soluja sisplatiinilla käsiteltyjen GAL-3 KO-hiirten munuaisissa kuin sisplatiinilla käsiteltyjen GAL-3 villihiirten (P<0.001), (fig.="" 11="" a,="" c,="" i).cleaved="">
Halkaistu PARP. Cleaved PARP -pitoisuus nousi merkittävästi (1446 ± 56,97 pg/mg)munuaisetsisplatiinilla hoidetuista GAL-3-villihiiristä verrattuna GAL-3-villikontrollihiiriin (171,5 ± 3,926 pg/mg), (P<0.001), (fig.="" 10b).="" there="" was="" a="" significant="" increase="" in="" cleaved="" parp="" concentration="" (2044="" ±="" 91.47="" pg/mg)="" in="" the="" kidneys="" of="" cisplatin-treated="" gal-3="" ko="" mice="" when="" compared="" with="" gal-3="" ko="" control="" mice="" (236.1="" ±="" 11.86="" pg/mg),=""><0.001), (fig.="" 10b).="" there="" was="" a="" significantly="" higher="" concentration="" of="" cleaved="" parp="" (2044="" ±="" 91.47="" pg/mg)="" in="" the="" kidneys="" of="" cisplatin-treated="" gal-3="" ko="" mice="" than="" in="" cisplatin-treated="" gal-3="" wild="" mice="" (1446="" ±="" 56.97="" pg/mg),=""><0.001), (fig.="" 10b).="" multiple="" comparisons="" between="" the="" four="" experimental="" groups="" using="" one-way="" anova,="" followed="" by="" newman-keuls="" post="" hoc="" test="" were="" statistically="" significant=""><>
Immunohistokemiallinen värjäys pilkotulle PARP:lle osoitti merkittävästi enemmän positiivisia soluja munuaisissa sisplatiinilla käsiteltyjen GAL-3 KO-hiirten kuin sisplatiinilla käsiteltyjen GAL-3 villihiirten (P<0.001), (fig.="" 11="" e,="" g,="">
TNF:ään liittyvä apoptoosia indusoiva ligandi (TRAIL). TRAIL-pitoisuus nousi merkittävästi (120,9 ± 4,748 pg/mg)munuaisetsisplatiinilla hoidetuista villihiiristä GAL-3 verrattuna GAL-3-villikontrollihiiriin (86,14 ± 2,879 pg/mg), (P<0.05), (fig.="" 10c).="" there="" was="" a="" significant="" increase="" in="" trail="" concentration="" (184.3="" ±="" 19.47="" pg/mg)="" in="" the="" kidneys="" of="" cisplatin-treated="" gal-3="" ko="" mice="" when="" compared="" with="" gal-3="" ko="" control="" mice="" (82.77="" ±="" 3.881="" pg/mg),=""><0.001), (fig.="" 10c).="" there="" was="" a="" significantly="" higher="" concentration="" of="" trail="" (184.3="" ±="" 19.47="" pg/mg)="" in="" the="" kidneys="" of="" cisplatin-treated="" gal-3="" ko="" mice="" than="" in="" cisplatin-treated="" gal-3="" wild="" mice="" (120.9="" ±="" 4.748="" pg/mg),=""><0.001), (fig.="" 10c).="" multiple="" comparisons="" between="" the="" four="" experimental="" groups="" using="" one-way="" anova,="" followed="" by="" newman-keuls="" post="" hoc="" test="" were="" statistically="" significant=""><>

Immunohistokemiallinen värjäys pilkkoutuneelle kaspaasille-3 osoitti merkittävästi enemmän apoptoottisia solujamunuaisetsisplatiinilla hoidetuista GAL-3 KO-hiiristä kuin sisplatiinilla hoidetuista GAL-3 villihiiristä (P<0.001), (fig.="" 11="" a,="" c,="">
Halkaistu PARP. Cleaved PARP -konsentraatio (1446 ± 56,97 pg/mg) lisääntyi merkittävästi sisplatiinilla käsiteltyjen villihiirten GAL-3 munuaisissa verrattuna GAL-3 -villikontrollihiiriin (171,5 ± 3,926 pg/mg) mg), (P<0.001), (fig.="" 10b).="" there="" was="" a="" significant="" increase="" in="" cleaved="" parp="" concentration="" (2044="" ±="" 91.47="" pg/mg)="" in="" the="">munuaisetsisplatiinilla hoidetuista GAL-3 KO-hiiristä verrattuna GAL-3 KO-kontrollihiiriin (236,1 ± 11.86 pg/mg), (P<0.001), (fig.="" 10b).="" there="" was="" a="" significantly="" higher="" concentration="" of="" cleaved="" parp="" (2044="" ±="" 91.47="" pg/mg)="" in="" the="" kidneys="" of="" cisplatin-treated="" gal-3="" ko="" mice="" than="" in="" cisplatin-treated="" gal-3="" wild="" mice="" (1446="" ±="" 56.97="" pg/mg),=""><0.001), (fig.="" 10b).="" multiple="" comparisons="" between="" the="" four="" experimental="" groups="" using="" one-way="" anova,="" followed="" by="" newman-keuls="" post="" hoc="" test="" were="" statistically="" significant=""><>
Immunohistokemiallinen värjäys pilkotulle PARP:lle osoitti merkittävästi suuremman määrän positiivisia solujamunuaisetsisplatiinilla hoidetuista GAL-3 KO-hiiristä kuin sisplatiinilla hoidetuista GAL-3 villihiiristä (P<0.001), (fig.="" 11="" e,="" g,="">
TNF:ään liittyvä apoptoosia indusoiva ligandi (TRAIL). TRAIL-konsentraatio (120,9 ± 4,748 pg/mg) lisääntyi merkittävästi sisplatiinilla käsiteltyjen villihiirten GAL-3 munuaisissa verrattuna GAL-3-villikontrollihiiriin (86.14). ± 2,879 pg/mg), (P<0.05), (fig.="" 10c).="" there="" was="" a="" significant="" increase="" in="" trail="" concentration="" (184.3="" ±="" 19.47="" pg/mg)="" in="" the="" kidneys="" of="" cisplatin-treated="" gal-3="" ko="" mice="" when="" compared="" with="" gal-3="" ko="" control="" mice="" (82.77="" ±="" 3.881="" pg/mg),=""><0.001), (fig.="" 10c).="" there="" was="" a="" significantly="" higher="" concentration="" of="" trail="" (184.3="" ±="" 19.47="" pg/mg)="" in="" the="">munuaisetsisplatiinilla hoidetuista GAL-3 KO-hiiristä kuin sisplatiinilla hoidetuista GAL-3 villihiiristä (120,9 ± 4,748 pg/mg), (P<0.001), (fig.="" 10c).="" multiple="" comparisons="" between="" the="" four="" experimental="" groups="" using="" one-way="" anova,="" followed="" by="" newman-keuls="" post="" hoc="" test="" were="" statistically="" significant=""><>
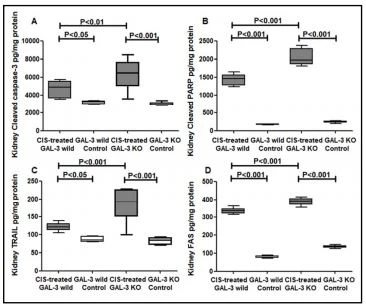
FAS-legenda.FAS-pitoisuus nousi merkittävästi (332,5 ± 6,395 pg/mg)munuaisetsisplatiinilla hoidetuista GAL-3-villihiiristä verrattuna GAL-3-villikontrollihiiriin (77,72 ± 2,805 pg/mg), (P<0.001), (fig.="" 10d).="" there="" was="" a="" significant="" increase="" in="" fas="" concentration="" (387.9="" ±="" 8.520="" pg/mg)="" in="" the="">munuaisetsisplatiinilla hoidetuista GAL-3 KO-hiiristä verrattuna GAL-3 KO-kontrollihiiriin (134,1 ± 3,597 pg/mg), (P<0.001), (fig.="" 10d).="" there="" was="" a="" significantly="" higher="" concentration="" of="" fas="" (387.9="" ±="" 8.520="" pg/mg)="" in="" the="" kidneys="" of="" cisplatin-treated="" gal-3="" ko="" mice="" than="" in="" cisplatin-treated="" gal-3="" wild="" mice="" (332.5="" ±="" 6.395="" pg/mg),=""><0.001), (fig.="">
Useat vertailut neljän koeryhmän välillä käyttäen yksisuuntaista ANOVAa, jota seurasi Newman-Keulsin post hoc -testi, olivat tilastollisesti merkitseviä (P<>
GAL-3 ja prosurvival signaalit
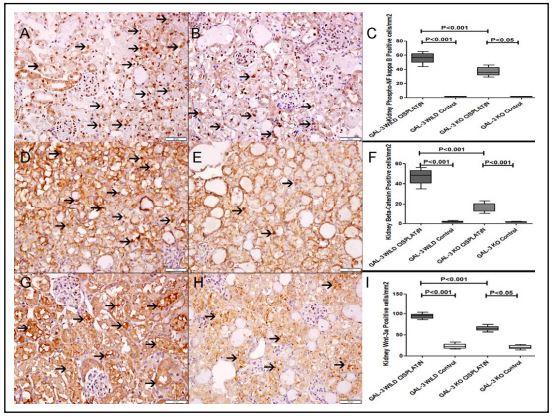
NF-KB.Immunohistokemiallinen värjäys fosfori-NF-KB:lle osoitti merkittävästi enemmän soluja, jotka oli värjätty fosfori-NF-KB:llämunuaisetsisplatiinilla hoidetuista villihiiristä GAL-3 kuin sisplatiinilla hoidetuista GAL-3 KO-hiiristä (P<0.001), (fig.="" 12="">
Beta Catenin.Immunohistokemiallinen värjäys beeta-kateniinille osoitti merkittävästi enemmän soluja, jotka oli värjätty beeta-kateniinillamunuaisetsisplatiinilla hoidetuista villihiiristä GAL-3 kuin sisplatiinilla hoidetuista GAL-3 KO-hiiristä (P<0.001), (fig.="" 12="">
Wnt-3a.Immunohistokemiallinen värjäys Wnt-3a:lle osoitti merkittävästi enemmän Wnt-3a:lla värjäytyneitä soluja sisplatiinilla käsiteltyjen GAL-3 villihiirten munuaisissa kuin sisplatiinilla käsiteltyjen GAL-3 KO-hiiret (P<0.001), (fig.="" 12="">

Plasma ureaPlasman ureakonsentraatio (23,88 ± 6,715 mmol/l) lisääntyi merkittävästi sisplatiinilla hoidetuissa villihiirissä GAL-3 verrattuna villiin GAL-3 -kontrollihiiriin (6,688 ± 0). 6066 mmol/L), (P<0.001), (fig.="" 13a).="" there="" was="" a="" significant="" increase="" in="" plasma="" urea="" concentration="" (36.10="" ±="" 2.878="" mmol/l)="" in="" cisplatin-treated="" gal-3="" ko="" mice="" when="" compared="" with="" gal-3="" ko="" control="" mice="" (8.331="" ±="" 0.5194="" mmol/l),=""><0.001), (fig.="" 13a).="" there="" was="" a="" significantly="" higher="" plasma="" urea="" concentration="" (36.10="" ±="" 2.878="" mmol/l)="" in="" cisplatin-treated="" gal-3="" ko="" mice="" than="" in="" cisplatin-treated="" gal-3="" wild="" mice="" (23.88="" ±="" 6.715mmol/l),=""><0.001), (fig.="">
Useat vertailut neljän koeryhmän välillä käyttäen yksisuuntaista ANOVAa, jota seurasi Newman-Keulsin post hoc -testi, olivat tilastollisesti merkitseviä (P<>
Plasman kreatiniini
Plasman kreatiniinikonsentraatio (48,42 ± 3,992 umol/L) lisääntyi merkittävästi sisplatiinilla hoidetuissa villihiirissä GAL-3 verrattuna villiin GAL-3 -kontrollihiiriin (13,27 ± 0). 3106 umol/l), (P<0.001), (fig.="" 13b).="" there="" was="" a="" significant="" increase="" in="" plasma="" creatinine="" concentration="" (62.36="" ±="" 3.605="" umol/l)="" in="" cisplatin-treated="" gal-3="" ko="" mice="" when="" compared="" with="" gal-3="" ko="" control="" mice="" (13.88="" ±="" 0.4183="" umol/l),=""><0.001), (fig.="" 13b).="" there="" was="" a="" significantly="" higher="" plasma="" creatinine="" concentration="" (62.36="" ±="" 3.605="" umol/l)="" in="" cisplatin-treated="" gal-3="" ko="" mice="" than="" in="" cisplatin-treated="" gal-3="" wild="" mice="" (48.42="" ±="" 3.992="" umol/l),=""><0.01), (fig.="" 13b).="" multiple="" comparisons="" between="" the="" four="" experimental="" groups="" using="" one-way="" anova,="" followed="" by="" newman-keuls="" post="" hoc="" test="" were="" statistically="" significant=""><>
Keskustelu
Akuuttimunuainenvammat ovat yleinen terveysongelma maailmanlaajuisesti. Joka vuosi on noin 13,3 miljoonaa akuuttia tapaustamunuainenvamma (AKI). Taakka, josta on tulossa erityisen suuri nousevissa maissa [21]. Maailmanlaajuisesti AKI:n aiheuttamia kuolemantapauksia on vuosittain 1,7 miljoonaa. Tästä noin 1,4 miljoonaa esiintyy alhaisen ja keskitulotason maissa [21]. AKI on usein ehkäistävissä ja hoidettavissa vain harvoilla, jos ollenkaan, pitkäaikaisilla terveysvaikutuksilla. AKI:n kehittämiseen osallistuvien päämekanismien ja toimijoiden tunnistaminen heijastuu potilaiden hoidon parantamiseen sekä kuolleisuuden ja sairastuvuuden minimoimiseen.
Olemme osoittaneet merkittävän kasvun GAL{0}}-pitoisuudessa vuonnamunuaisetalistettu AKI:lle. Olemme myös osoittaneet merkittävästi korkeamman GAL-3:n ilmentymisen akuutin tubulusnekroosin aiheuttamissa munuaistiehyissä sisplatiinilla hoidetuissa villihiirissä GAL-3 kuin munuaistiehyissä suolaliuoksella hoidetussa kontrolliryhmässä. GAL-3:n sekä sytoplasma- että tumapitoisuudet kohoavat merkittävästi munuaistiehyissä ATN:n jälkeen verrattuna suolaliuoksella käsiteltyihin hiiriin. Kohonnut GAL-3 taso loukkaantuneissa munuaistiehyissä viittaa siihen, että GAL-3 on tärkeä toimija ATN:ssä.
Olemme myös käyttäneet GAL-3 KO-hiiriä tutkiaksemme GAL-3:n mekaanista roolia ATN:ssä. Tämä auttaa meitä tarkastelemaan tarkasti pro-apoptoottisten, pronekroptoottisten ja selviytymistä edistävien proteiinien modulaatioita GAL-3:n läsnäollessa ja poissa ja määrittää, onko GAL-3 vaikutusta näihin muutoksiin vai ei. .
Olemme osoittaneet, että sisplatiinilla hoidetuissa GAL-3 KO-hiirissä on huomattavasti suurempi prosenttiosuus ATN:stä kärsiviä tubuluksia kuin sisplatiinilla hoidetuissa GAL-3-villihiirissä. Tuloksemme ovat myös osoittaneet merkittävän katepsiini B:n ja katepsiini D:n lisääntymisen munuaisissa, joihin ATN vaikuttaa. Lisäksi katepsiini B:tä ja katepsiini D:tä on huomattavasti korkeampimunuaisetsisplatiinilla hoidetuista GAL-3 KO-hiiristä kuin sisplatiinilla hoidetuista GAL-3-villihiiristä. Katepsiineilla on tärkeä rooli signalointireiteissä, jotka ohjaavat apoptoottista ja nekroottista solukuolemaa, hajottamalla erilaisia substraatteja ja/tai edistämällä mitokondrioiden epävakautta [22]. Lysosomaaliset proteaasit, katepsiini B ja katepsiini D ilmentyvät runsaasti munuaisissa [23].
Katepsiini B, kysteiiniproteinaasi, jolla on optimaalinen aktiivisuus happamassa ympäristössä, osallistuu moniin fysiologisiin ja patologisiin prosesseihin. Se pilkkoo solun rakenneproteiineja ja entsyymejä, hajottaa tyvikalvon pääelementtejä ja aktivoi proentsyymejä, hormoneja ja kasvutekijöitä [24]. Katepsiini B:n kohonneita ilmentymistasoja ja aktivaatiota on havaittu ihmisen proksimaalisessa tubulusepiteelisolulinjassa HK-2, joka käy läpi apoptoosin [25].
Katepsiini D ilmentyy merkittävästi proksimaalisissa tubulussoluissa. Katepsiini D on keskeinen lysosomaalinen asparagiiniproteaasi, joka on vastuussa proteiinien ja organellien hajoamisesta autofagia-lysosomaalisesti sekä solunekroosin ja lysosomaalisen kalvon repeämisen aikana [26]. Katepsiini D on lisääntynyt merkittävästi vaurioituneissa tubuluksissa munuaisiskemian/reperfuusiovaurion jälkeen, mikä tukee havaintoa katepsiini D:n merkittävästä lisääntymisestämunuaisetakuutti tubulusnekroosi [27].
Korkeammat katepsiini B- ja D-tasot, joissa on suurempi ATN-prosenttimunuaisetsisplatiinilla hoidetuista GAL-3 KO-hiiristä kuin sisplatiinilla käsitellyistä GAL-3 -villihiiristä ehdottavat GAL-3:a antinekroottisena välittäjänä.
Olemme myös osoittaneet merkittävästi korkeampia nekroptoosiproteiinitasoja; RIPK1, RIPK3 ja MLKL sisäänmunuaisetsisplatiinilla käsitellyistä hiiristä. Lisäksi olemme tunnistaneet merkittävästi korkeammat RIPK1-, RIPK3- ja MLKL-pitoisuudet sisplatiinilla käsiteltyjen GAL-3 KO -hiirten munuaisissa kuin sisplatiinilla käsiteltyjen GAL-3 villihiirten.
Tutkimukset ovat osoittaneet, että sisplatiini liittyy lisääntyneeseen oksidatiiviseen stressiin [28]. Reaktiivisten happilajien (ROS) muodostuminen, lipidiperoksidaatiotuotteiden kertyminen sisäänmunuaiset, ja tukahdutetun antioksidanttijärjestelmän uskotaan olevan sisplatiinin aiheuttaman AKI:n tärkeimpiä mekanismeja [29]. Solun sisällä sisplatiini muuttuu erittäin reaktiiviseksi muodoksi, joka reagoi nopeasti tiolia sisältävien antioksidanttimolekyylien, kuten glutationin, kanssa [30]. Sisplatiini voi myös aiheuttaa mitokondrioiden toimintahäiriöitä ja lisätä ROS-tuotantoa heikentyneen hengitysketjun kautta [31]. ROS helpottaa RIPK1:n autofosforylaatiota ja edistää RIPK-3:n kerääntymistä ja nekrosomin muodostumista [32]. Lisäksi ROS on kriittinen lysosomaalisen kalvon läpäisevyyden (LMP) indusoija [33].
Cai et ai. [34] ovat osoittaneet, että ROS-välitteinen LMP osallistuu nekroptoosin induktioon kanin nikamavälilevysoluissa. Samoin RIPK1-indusoitua mitokondrio-ROS-tuotantoa seuraa LMP ja mitokondrioiden toimintahäiriö Ca2 plus:n ja JNK:n välisen positiivisen palautesilmukan seurauksena, mikä johtaa A549- ja H1299-solujen nekroptoosiin [35, 36].
Lisäksi on osoitettu, että nekroptoosissa säädelty RIPK3 indusoi endoplasmista verkkokalvon stressiä, mikä lisää solun Ca2 plus -pitoisuutta ja ksantiinioksidaasin ilmentymistä, mikä johtaa tehostettuun ROS-tuotantoon [37].
Katepsiinit B ja D ovat tärkeimmät toiminnalliset sisällöt, jotka vapautuvat lysosomeista, joissa LMP on lisääntynyt solukuolemaprosessin aikana [34]. Katepsiini B:n ja D:n aktivaatio voi lisätä nekroptoottista reittiä [38]. Joten nekroptoosi voidaan indusoida reseptorista riippumattomalla tavalla [39]. Lisäksi raportit ovat osoittaneet, että ROS:n, katepsiini B:n ja D:n lisäksi on muita ärsykkeitä nekroptoosin indusoimiseksi, ja näihin kuuluvat TRAIL- ja FAS-legendaproteiinien säätely [40]. Sisplatiinista tai RIPK1:n tai RIPK3:n induktiosta johtuva lisääntynyt ROS voi siis johtaa lisääntyneeseen LMP:hen ja katepsiini B:n ja D:n vapautumiseen, mikä puolestaan lisää nekroptoosia. Samoin lisääntynyt ROS voi aktivoida RIPK1:n, RIPK3:n rekrytoinnin, nekrosomien muodostumisen tehostamisen, MLKL:n fosforylaation, fosforyloidun MLKL:n siirtymisen solukalvoon, mikä johtaa nekroottiseen solukuolemaan plasmakalvon läpäisevyyden ja repeämisen kautta.
Tässä tutkimuksessa uskomme, että lisääntynyt ROS, katepsiini B, katepsiini D, TRAIL ja FAS ovat mukana nekroptoosin induktiossa ATN:ssä.
Määrittääksemme GAL-3:n roolin nekroptoosissa olemme mitanneet RIPK1-, RIPk3- ja MLKL-pitoisuudet GAL-3:n läsnä ollessa ja poissa käyttämällä GAL-3 wildia ja GAL{{5 }} KO-hiiret.
Merkittävästi korkeammat RIPK1-, RIPK3- ja MLKL-pitoisuudet sisplatiinilla hoidetuissa GAL-3 KO-hiirissä kuin sisplatiinilla hoidetuissa GAL-3-hiirissä osoittavat, että GAL-3:n poistaminen liittyy nekroptoosiproteiinien merkittävä lisääntyminen, mikä viittaa GAL:n nekroptoottiseen rooliin-3.
Lisäksi olemme osoittaneet merkittävästi korkeampia pro-apoptoottisia proteiineja; pilkkonut kaspaasia-3, pilkkonut PARP-, TRAIL-, FAS- ja apoptoottisia kappaleitamunuaisetseuraamassa ATN:ää.
ATN:n aikana lysosomaalisen kalvon permeabilisaatio mahdollistaa katepsiini D:n ja katepsiini B:n siirtymisen lysosomista sytosoliin, jossa se voi käyttää pro-apoptoottista toimintaansa. Sytosolinen katepsiini D pilkkoo Bid-proteiinin tBidiksi ja laukaisee Bax-proteiinin liittämisen mitokondriokalvoon. Tämä johtaa sytokromi c:n vapautumiseen mitokondrioista sytosoliin ja prokaspaasien 9 ja 3 aktivoitumiseen [41]. Tässä tutkimuksessa sekä immunofluoresoiva värjäys että proteiinipitoisuus ovat osoittaneet merkittävästi korkeamman solunsisäisen GAL-3:n, sekä sytoplasmisten että tumafraktioiden, ilmentymisen ATN:ssämunuaisetGAL-3 villihiiristä verrattuna kontrollihiiriin.
Joten korkeammat pro-apoptoottisten proteiinien tasot; pilkkonut kaspaasi-3, TRAIL, FAS ja apoptoottiset kappaleetmunuaisetsisplatiinilla hoidetuista GAL-3 KO-hiiristä kuin sisplatiinilla hoidetuista GAL-3-villihiiristä, viittaa GAL-3:n apoptoottiseen rooliin. GAL-3:n on havaittu osallistuvan kriittisesti apoptoosiin sen subsellulaarisesta sijainnista riippuen. Tutkimukset ovat osoittaneet, että solunsisäinen GAL-3 voi estää apoptoosia [42-44]. GAL{10}} anti-apoptoottisen roolin tueksi olemme tunnistaneet huomattavasti suuremman määrän soluja, jotka ilmentävät fosfo-NF-κB-, beeta-kateniini- ja Wnt-proteiineja munuaisissa sisplatiinilla käsitellyn GAL:n{{15} } villihiiriä kuin GAL-3 KO-hiiriä. NF-κB on transkriptiotekijä, jolla on tärkeä rooli tulehduksen, solujen lisääntymisen ja solujen eloonjäämisen säätelyssä. Fosforylaatiolla on kriittinen rooli NF-KB:n aktivoinnissa kaikkien näiden ärsykkeiden jälkeen [45]. NF-κB tunnustetaan nyt tärkeäksi tekijäksi solujen selviytymisessä ja suojassa apoptoosilta [46]. Wnt-proteiineilla on osoitettu olevan suojaavia vaikutuksia vahingoittuneisiin soluihin niiden anti-apoptoottisen toiminnan kautta -kateniinin ja c-Myc:n aktivoinnin kautta [47].
Wu et ai. ovat myös osoittaneet merkittävän p-NF-KB:n lisääntymisenmunuaisetATN:n kanssa [48]. Wang et ai. ovat myös osoittaneet Wnt/-catenin-signalointireitin voimistuneen akuutissa munuaisvauriossa [49]. Tutkimukset ovat osoittaneet, että NF-κB osallistuu GAL-3 [50] induktioon ja GAL-3 osallistuu NF-κB:n aktivaatioon [51]. Mielenkiintoista on, että GAL{10}} on -kateniinin uusi sitova kumppani [52].
Nämä havainnot viittaavat siihen, että GAL-3:n anti-apoptoottinen rooli voidaan välittää myös NF-κB- ja Wnt/-kateniinireittien aktivoinnin kautta. GAL-3 näyttää yhdistävän nämä tutkimuksessamme tutkitut eloonjäämistä edistävät signaalinvälitysreitit. Näillä poluilla on myös ristiinkeskusteluja eri tasoilla. Wnt/-catenin-reitin pelaajat moduloivat monia vaikutuksiaan vuorovaikutuksella NF-kB:n kanssa ja vastavuoroisesti NF-kB vaikuttaa myös Wnt/-catenin-signalointireittiin [53]. Siksi on ymmärrettävää, että GAL-3 on keskeisessä liittimessä prosurvival-signaalin siirtoreiteissä.
Tutkimuksemme osoittaa, että solunsisäisen GAL-3 esiintyminen tai puuttuminen liittyy merkittäviin muutoksiin proapoptoottisissa, pronekroptoottisissa ja prosurvival proteiineissa sisplatiinin aiheuttamassa ATN:ssa ja että korkeat GAL-3-tasot munuaistiehyissä välittää anti-apoptoottista, antinekroptoottista ja prosurvival-ympäristöä, joka voi muokata taudin tulevaa kulkua. Tämä viittaa GAL-3:n suojaavaan rooliin akuutissa sisplatiinin aiheuttamassa ATN:ssä, mitä tukevat merkittävästi alhaisemmat plasman urea- ja kreatiniinipitoisuudet GAL-3 villi sisplatiinilla hoidetuissa hiirissä kuin GAL-3 KO-sisplatiinilla käsitellyt hiiret (kuvio 13).
Johtopäätös
GAL-3 voi vaikuttaa solujen eloonjäämiseen ja kuolemaan vuorovaikutuksessa nekroptoottisten, apoptoottisten ja eloonjäämistä edistävien proteiinien kanssa munuaistiehyissä sisplatiinin aiheuttaman akuutin tubulusnekroosin aikana.
Kiitokset
Tekijän panokset
Kaikki kirjoittajat tarkastelivat ja hyväksyivät lähetetyn version käsikirjoituksesta. SA esitteli konseptin, suunnitteli tutkimuksen, analysoi ja tulkitsi tiedot, suunnitteli luvut ja kirjoitti paperin. GJ suoritti eläinkokeita ja ELISA-tekniikan, MS suoritti immunohistokemiallisen ja immunofluoresoivan värjäyksen ja siihen liittyvän kudoskäsittelyn. HT suoritti eläinkokeita ja ELISA-tekniikkaa. JY teki biokemiallisen analyysin munuaisten toiminnasta ja toimitti saadut tiedot.
Ilmoitus
Kirjoittajat ilmoittavat, ettei heillä ole kilpailevia etuja.
Viitteet
1 Lameire NH, Bagga A, Cruz D, De Maeseneer J, Endre Z, Kellum JA, Liu KD, Mehta RL, Pannu N, Van Biesen W, Vanholder R: Akuutti munuaisvaurio: kasvava globaali huolenaihe. Lancet 2013;382:170-179.
2 KDIGO: Akuutin munuaisvaurion kliinisen käytännön ohje. Kidney Int 2012; 2:1–138.
3 Schumer M, Colombel MC, Sawczuk IS, Globe G, Connor J, O'Toole KM, Olsson CA, Wise GJ, Buttyan R: Morfologiset, biokemialliset ja molekulaariset todisteet apoptoosista reperfuusiovaiheen aikana lyhyiden munuaisiskemian jaksojen jälkeen Am J Pathol 1992;140:831-838.
4 Schumer AT, Davies DR, McLaren AJ, Cerundolo L, Morris PJ, Fuggle SV: Apoptoosi ihmisen munuaissiirteen iskemiassa/reperfuusiovauriossa. Transplantation 1998;66:872-876.
5 Degterev A, Huang Z, Boyce M, Li Y, Jagtap P, Mizushima N, Cuny GD, Mitchison TJ, Moskowitz MA, Yuan J: Ei-apoptoottisen solukuoleman kemiallinen estäjä, jolla on terapeuttinen mahdollisuus iskeemiseen aivovaurioon. Nat Chem Biol 2005;1:112-119.
6 Vandenabeele P, Galluzzi L, Vanden Berghe T, Kroemer G: Nekroptoosin molekyylimekanismit: tilattu soluräjähdys. Nat Rev Mol Cell Biol 2010;11:700-714.
7 Chen X, Li W, Ren J, Huang D, He WT, Song Y, Yang C, Li W, Zheng X, Chen P, Han J: Sekalinjaisen kinaasidomeenin kaltaisen proteiinin translokaatio plasmakalvoon johtaa nekroottiseen soluun kuolema. Cell Res 2014;24:105–121.
8 Cai Z, Jitkaew S, Zhao J, Chiang HC, Choksi S, Liu J, Ward Y, Wu LG, Liu ZG: Trimeroidun MLKL-proteiinin plasmakalvon translokaatiota tarvitaan TNF:n aiheuttamaa nekroptoosia varten. Nat Cell Biol 2014;16:55–65.
9 Wang Y, Liu Y, Liu Y, Zhou W, Wang H, Wan G, Sun D, Zhang N, Wang Y: sisplatiinin polymeerinen aihiolääke, joka perustuu pullulaaniin kohdennettuun hoitoon hepatosellulaarista karsinoomaa vastaan. Int J Pharm 2015; 483:89–100.
10 Pablo N, Dong Z: Sisplatiinin nefrotoksisuus: mekanismit ja renoprotektiiviset strategiat. Kidney Int 2008;73:994–1007.
11 Mi XJ, Hou JG, Wang Z, Han Y, Ren S, Hu JN, Chen C, Li W: Maltolin suojaavat vaikutukset sisplatiinin aiheuttamaan nefrotoksisuuteen AMPK-välitteisten PI3K/Akt- ja p53-signalointireittien kautta. Sci Rep 2018;8:15922.
12 Ozkok A, Edelstein CL: Sisplatiinin aiheuttaman akuutin munuaisvaurion patofysiologia. Biomed Res Int 2014;2014:1–17.
13 Hughes RC: Nisäkkäiden hiilihydraattia sitovien proteiinien galektiiniperheen eritys. Biochim Biophys Acta 1999; 1473:172-185.
14 Liu FT, Patterson RJ, Wang JL: Galektiinien solunsisäiset toiminnot. Biochim Biophys Acta 2002; 1572:263- 273.
15 van den Brûle FA, Waltregny D, Liu FT, Castronovo V: Galektiinin -3 sytoplasmisen/nukleaarisen ilmentymismallin muutos korreloi eturauhassyövän etenemisen kanssa. Int J Cancer 2000;89:361-367.
16 Xue J, Gao X, Fu C, Cong Z, Jiang H, Wang W, Chen T, Wei Q, Qin C: O-glykaanien ja N-glykaanien galektiini-3-indusoiman Jurkat-solujen apoptoosin säätely CD45:llä. FEBS Lett 2013;587:3986-3994.
17 Matarrese P, Fusco O, Tinari N, Natoli C, Liu FT, Semeraro ML, Malorni W, Iacobelli S: Galektiinin-3 yliekspressio suojaa apoptoosilta parantamalla solun adheesio-ominaisuuksia. Int J Cancer 2000;85:545- 554.
18 Oka N, Nakahara S, Takenaka Y, Fukumori T, Hogan V, Kanayama HO, Yanagawa T, Raz A: Galektiini-3 estää kasvainnekroositekijään liittyvää apoptoosia aiheuttavaa ligandin aiheuttamaa apoptoosia aktivoimalla Akt:n ihmisen virtsarakossa karsinoomasolut. Cancer Res 2005;65:7546-7553.
19 Hashmi S, Al-Salam S: Galektiini-3 ilmentyy sydänlihaksessa hyvin varhaisessa sydäninfarktin jälkeisessä vaiheessa. Cardiovasc Pathol 2015;24:213-223.
20 Zhang S, Li R, Dong W, Yang H, Zhang L, Chen Y, Wang W, Li C, Wu Y, Ye Z, Zhao X, Li Z, Zhang M, Liu S, Liang X: RIPK3 välittää munuaistiehyitä epiteelisolujen apoptoosi endotoksiinin aiheuttamassa akuutissa munuaisvauriossa. Mol Med Rep 2019;20:1613-1620.
21 Liyanage T, Ninomiya T, Jha V, Neal B, Patrice HM, Okpechi I, Zhao MH, Lv J, Garg AX, Knight J, Rodgers A, Gallagher M, Kotwal S, Cass A, Perkovic V: Maailmanlaajuinen pääsy hoitoon loppuvaiheen munuaissairauden osalta: systemaattinen katsaus. Lancet 2015;385:1975-1982.
22 Turk B, Stoka V: Proteaasisignalointi solukuolemassa: kaspaasit vs. kysteiinikatepsiinit. FEBS Lett 2007; 581:2761–2767.
23 Pavlock GS, Southard JH, Starling JR, Belzer FO: Lysosomaalisen entsyymin vapautuminen ihonalaisesti perfusoiduissa koiran munuaisissa. Cryobiology 1984;21:521-528.
24 Werle B, Jülke B, Lah T, Spiess E, Ebert W: Katepsiini B -fraktiolla, joka on aktiivinen fysiologisessa pH:ssa 7,5, on prognostinen merkitys ihmisen keuhkojen levyepiteelikarsinoomassa. Br J Cancer 1997;75:1137-1143.
25 Wang C, Jiang Z, Yao J, Wu X, Sun L, Liu C, Duan W, Yan M, Sun L, Liu J, Zhang L: Katepsiini B:n osallistuminen emodiinin aiheuttamaan apoptoosiin HK:ssa-2 Solut. Toxicol Lett 2008;181:196–204.
26 Suzuki C, Tanida I, Ohmuraya M, Oliva Trejo JA, Kakuta S, Sunabori T, Uchiyama Y: Katepsiini D:n puute munuaisten proksimaalisissa tubulussoluissa johti lisääntyneeseen herkkyyteen munuaisiskemiaa/reperfuusiovauriota vastaan. Int J Mol Sci 2019; 20:1711.
27 Lameire N, Van Biesen W, Vanholder R. Akuutti munuaisten vajaatoiminta. Lancet 2005;365:417-430.
28 Yu W, Chen Y, Dubrulle J, Stassi F, Putluri V, Sreekumar A, Putluri N, Baluya D, Lai SY, Sandulache VC: Sisplatiini synnyttää oksidatiivista stressiä, johon liittyy nopeita muutoksia keskushiilen aineenvaihdunnassa. Sci Rep 2018; 8:4306.
29 Aydinoz S, Uzun H, Cermiketal G: Erilaisten painehappiannosten vaikutukset sisplatiinin aiheuttamaan nefrotoksisuuteen. Munuaisten vajaatoiminta 2007;29:257–263.
30 Siddik ZH: Sisplatiini: sytotoksinen vaikutustapa ja resistenssin molekyyliperusta. Oncogene 2003; 22:7265–7279.