Osa 2: Proteinurinen krooninen munuaissairaus liittyy muuttuneeseen punasolujen elinikään, muodonmuutokseen ja aineenvaihduntaan
Mar 05, 2022
Jos kyseessä on osa 1, klikkaaTÄÄLLÄ.
Yhteystiedot: emily.li@wecistanche.com
Doksorubisiinin aiheuttama munuaisvaurio muuttaa hiiren RBC:n elinikää, morfologiaa ja biofysikaalisia ominaisuuksia
Kaksikymmentä päivää DIN: n induktion jälkeen, samaan aikaan vähentyneen kehityksen kanssamunuaisten toiminta(Kuva 1b), fluoresoiva väriaine 5(6)-CFDA, SE,24, joka otetaan nopeasti RBC-yhdisteisiin, injektoitiin i.v. RBC-puhdistumanopeuden tutkimiseksi ilmoitettuina ajankohtina in vivo. Kuvassa 4a esitetyt edustavat histogrammit osoittavat merkittyjen RBC:iden poistamisen verenkierrosta ja korvaamisen merkitsemättömillä RBC:illä. Lisääntynyt RBC-häviö oli ilmeinen jo 3 päivää väriaineen antamisen jälkeen, ja RBC:iden puhdistuma oli huomattavasti nopeampi 129S1/SvImJ-hiirillä, joilla oli DIN päivään 37 asti. Päivänä 41 z17% enemmän RBC:itä poistettiin näiden hiirten verenkierrosta verrattuna terveisiin hiiriin (kuva 4b).

Cistancheparantaamunuaisten toimintajaEtujaMunuaiset
Verinäytteestä otetut kuvat paljastivat morfologisia muutoksia RBC:issä, jotka on otettu 129S1/SvImJ-hiiristä, joilla oli DIN (kuva 4c) ja Nphs2Dipod-hiirillä (lisäkuva S4A). Terveissä hiirissä RBC:illä on kaksisuuntaisen levyn muoto. 129S1/SvImJ-hiirillä, joilla oli DIN, havaitsimme lisääntyneen määrän stomatosyyttejä (punaisia tähtiä), kyynelsoluja (musta kolmio), skistosyyttejä (mustia pisteitä) ja mikrosyyttisiä soluja (musta nuoli) (kuva 4c). Nphs2Dipod-hiirillä oli lisääntynyt osuus skiskosyyteistä (mustat pisteet, täydentävä kuva S4A, alempi kuva, vasen puoli) ja solut olivat polykromaattisia (täydentävä kuva S4A, alempi kuva, oikea puoli).
RBC:n toiminnallisten muutosten tutkimiseksi tarkemmin deformoituvuusmittaukset päivänä 30 suoritettiin ektasytometrialla.32RBC:n muodonmuutos väheni merkittävästi 129S1/SvImJ-hiirillä, joilla oli DIN, sekä Nphs2Dipod-hiirillä, kuten pienentynyt maksimivenymäindeksi (EImax) osoittaa (kuva 4d ja lisäkuva S4B). Leikkausstressi 50 %:lla (SS1/2) EImax:sta (kuva 4e) ja siten SS1/2 EImax -suhde (kuva 4f) lisääntyivät merkittävästi 129S1/SvImJ-hiirillä, joilla oli DIN, mikä osoittaa jäykempiä RBC:itä. SS1/2 EImax-suhde kasvoi yleensä Nphs2Dipod-hiirillä verrattuna terveisiin C57BL/6-hiiriin; ero ei kuitenkaan saavuttanut tilastollista merkitsevyyttä (P 1/4 0,06) (täydentävä kuva S4D).


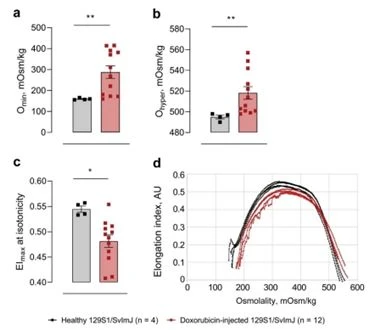
Koska RBC:iden altistuminen hypertonisille solunulkoisille tiloille jäljittelee in vitro munuaismedullassa esiintyvää osmoottista ympäristöä, kosmos voidaan suorittaa päivänä 30 ja useita osmosensitiivisiä parametreja määritettiin, kuten aiemmin on kuvattu.33Omin edustaa osmolaliteettia vähintään RBC-muodonmuutoksella, jonka jälkeen RBC: t lyseisivät osmolaarisuuden vähenemisen myötä. Omin-arvot olivat korkeammat 129S1/SvImJ-hiirillä, joilla oli DIN, ja ne siirtyivät oikealle (kuvat 5a ja d). Samanlainen taipumus kohti korkeampaa Ominia havaittiin Nphs2Dipod-hiirillä (täydentävä kuva S4E). Ohyperin arvot, jotka heijastavat solujen nesteytystilaa, olivat huomattavasti korkeammat 129S1/SvImJ-hiirillä, joilla oli DIN (kuva 5b), mutta ne olivat samanlaisia Nphs2Dipod-hiirillä ja niiden vastaavilla kontrollihiirillä (täydentävä kuva S4F). Suurin muodonmuutoskyky (EImax) isotoniteetissa on piste, jossa solut ovat saavuttaneet maksimaalisen elliptisyyden. EImax isotoniteetilla pieneni merkittävästi 129S1/SvImJ-hiirillä, joilla oli DIN (kuva 5c), mutta siinä ei havaittu eroja Nphs2Dipod-hiirillä verrattuna terveisiin C57BL/6-hiiriin (täydentävä kuva S4G). Kaiken kaikkiaan nämä tulokset osoittavat kalvon eheyden ja elastisuuden heikkenemistä, mutta myös muodonmuutoksia 129S1/ SvImJ- ja Nphs2Dipod-hiirillä sekä RBC:iden suurempaa osmoottista haurautta 129S1/SvImJ-hiirillä, joilla on DIN.

RBC: t ohjelmoidaan metabolisesti uudelleen proteiinisen munuaissairauden aikana hiirillä
Jotta ymmärrettäisiin paremmin molekyylisovituksia, jotka liittyvät RBC:n runsauden ja morfologian muutoksiin munuaisvaurion funktiona, 129S1/SvImJ-hiirien RFC:t, joilla oli DIN- ja Nphs2Dipod-hiiriä, analysoitiin massaspektrometriaan perustuvalla metabolomiikalla (kuva 6a ja täydentävä kuva S5A). Tätä lähestymistapaa käyttäen 256 metaboliitin suhteelliset tasot määritettiin 129S1/SvImJ-hiirille ja Nphs2Dipod-hiirille. Näiden tietojen analysoimiseksi systemaattisella tavalla suoritettiin monimuuttujateanalyyttejä, mukaan lukien osittaiset pienimmät neliösummat syrjivä analyysi ja hierarkkinen klusterointianalyysi. Mielenkiintoista on, että molempien mallien osittain vähiten neliöitä syrjivä analyysi RBC-metabolomeista paljasti samanlaisia klusterointimalleja.
Tarkemmin sanottuna, vaikka näytteet mallin induktiohetkellä ryhmittyivät yhteen terveiden näytteiden kanssa kaikista aikapisteistä, nefroottisten hiirten näytteet ryhmittyivät itsenäisesti terveistä kontrollinäytteistä yhdessä komponentin 1 kanssa (kuva 6b ja täydentävä kuva S5B). 2 mallissa ilmenneiden klusterointimallien mukaisesti kunkin mallin metabolomiikkatietojen hierarkkinen klusterointianalyysi korosti samanlaisia suuntauksia oksidatiiviseen stressinhallintaan osallistuville metaboliiteille sekä nukleo-vuorovesille, aminohapoille, asyylikarnitiineille ja rasvahapoille (kuva 6c ja lisäkuvat S5C, S6 ja S7). Esimerkiksi allantoiinin, puriinikataboliitin ja oksidatiivisen stressin markkerin tasot RBC:issä,34ja pelkistetty glutationi, jotka molemmat kertyivät merkittävästi ajan myötä molemmissa nefroottisissa hiirimalleissa, mikä osoittaa jatkuvaa reaktiivisten happilajien muodostumista ja antioksidanttisen glutationijärjestelmän aktivoitumista (kuva 6d ja täydentävä kuva S5D). Samoin koentsyymi A :n (CoA) esiasteen pantotenaatin tasot kertyvät ajan myötä (kuva 6e ja täydentävä kuva S5E).


Samanlaisia kuvioita ilmeni vapaiden rasvahappojen heksadeseenihapon (C16:1), oktadekeenihapon (C18:1) ja dokosapentaeenihapon (C22:5) tasoilla, vaikka jokaisella mallilla oli ainutlaatuisia ajallisia kuvioita (kuva 6f ja täydentävä kuva S5F).
Rasvahappojen lisäksi asyylikarnitiinit, mukaan lukien hydroksioktanolikarnitiini (AC C8-OH), hydroksidekanoyylikarnitiini (AC C10-OH) ja dodekanoyylikarnitiini (AC C12:1), reagoivat myös proteinurisen nefropatian induktioon molemmissa malleissa (kuva 6g ja täydentävä kuva S5G).
Yhdessä nämä havainnot viittaavat siihen, että proteiinin induktion yhteydessämunuaistauti2 samanlaisessa hiirimallissa lisääntynyt oksidatiivisen stressin taso voi vahingoittaa kalvolipidien asyyliketjuja. Koska RBC: llä ei ole kykyä syntetisoida uusia lipidejä, ne käyttävät järjestelmää, joka on riippuvainen fosfolipaasivälitteisestä vaurioituneiden asyyliketjujen poistamisesta ja korvaamisesta vahingoittumattomilla rasvahapoilla. Tätä järjestelmää kutsutaan Lands-sykliksi35, ja se on riippuvainen asyyliketjun aktivoitumisesta konjugoimalla CoA: han, mikä luo tasapainon asyylikarnitiinin kanssa kalvon korvaamiseksi36 (kuva 6h ja täydentävä kuva S5H).
Proteinuriset CKD-potilaat, joilla on anemia, osoittavat lisääntynyttä RBC-kuolemaa
Vahvistaaksemme, että ps-altistuvia RBC:itä esiintyy myös ihmisen CKD:ssä, kuten aiemmin on kuvattu37, analysoimme verinäytteitä 25 potilaalta, joita poliklinikamme hoiti. Sovittaaksemme nefroottista oireyhtymää edustavat hiirimallit säilyneeseen GFR: ään ensimmäisten 10 päivän aikana ja sitten pitkälle edenneen CKD: n kanssa vähentyneellä GFR: llä päivästä 20 lähtien (kuva 1 ja täydentävä kuva S2), analysoimme 10 potilasta, joilla oli primaarinen nefroottinen oireyhtymä, joka edustaa proteinurista CKD: tä säilyneellä GFR: llä (>60 ml / min / 1,73 m2) ja 15 potilasta, joilla oli CKD ja joilla oli nefroottinen proteiiniuria ja GFR<60 ml/min="" per="" 1.73="">2. Potilaan ominaisuudet on esitetty taulukossa 1. Munuaissairauteen liittyvä anemia, sellaisena kuin se määritellään hemoglobiinipitoisuudella<13.5 g/dl="" in="" men="" and=""><12 g/dl="" in="" women,="" was="" observed="" in="" 4="" of="" the="" 10="" primary="" nephrotic="" patients="" (red="" triangles="" in="" figure="" 7),="" whereas="" 14="" of="" 15="" ckd="" patients="" with="" nephrotic-range="" proteinuria="" and="" reduced="" gfr="" were="" anemic="" (figure="" 7a).="" in="" the="" latter="" group,="" plasma="" epo="" concentrations="" and="" reticulocyte="" production="" index="" were="" not="" increased="" (figure="" 7b="" and="" c),="" consistent="" with="" reduced="" erythropoiesis.="" in="" fluorescence-activated="" cell="" sorting="" analysis,="" primary="" nephrotic="" patients="" and="" patients="" with="" advanced="" ckd="" had="" a="" higher="" rate="" of="" ps-exposing="" cells="" (mean,="" 1.0%="" 0.3%="" and="" 1.4%="" 0.7%,="" respectively)="" compared="" with="" healthy="" subjects="" (mean,="" 0.6%="" 0.1%;="" figure="" 7d).="" rbc="" cell="" death="" in="" patients="" with="" primary="" nephrotic="" syndrome="" and="" advanced="" ckd="" was="" triggered="" by="" higher="" levels="" of="" reactive="" oxygen="" species="" (figure="" 7e)="" and="" increased="" ceramide="" levels="" (figure="" 7f).="" augmented="" intracellular="" calcium="" concentration="" was="" found="" in="" patients="" with="" advanced="" ckd="" (figure="">
Primaarista nefroottista oireyhtymää ja pitkälle edennyttä CKD:tä sairastavien potilaiden ihmisen RBC:t osoittivat morfologisia muutoksia, kuten hiirimalleissa on havaittu (kuvat 4c ja 7j–l sekä täydentävä kuva S4A). Vaikka RBC-morfologia oli normaalia verrokeissa, aneemisilla potilailla, joilla oli primaarinen nefroottinen oireyhtymä, ja pitkälle edenneillä CKD-potilailla oli lisääntynyt määrä kyynelsoluja (mustia kolmioita) ja piikkisoluja (mustia ristejä) (kuvat 7k ja l). Lisäksi kohdesoluja esiintyi primaarisilla nefroottisilla potilailla, joilla oli anemia, ja potilailla, joilla oli pitkälle edennyt CKD (punaiset ristit; Kuviot 7k ja l). Kaikilla potilasryhmillä, mukaan lukien primaariset nefroottiset potilaat, joilla ei ollut anemiaa, oli lisääntynyt sherosyyttien osuus (siniset nuolet; Kuvio 7j–l). Ihmisen RBC: n muodonmuutoksen analysoimiseksi suoritettiin ektasytometria. Terveisiin kontrolleihin verrattuna suurin muodonmuutoskyky (EImax) heikkeni potilailla, joilla oli pitkälle edennyt CKD (kuva 7h); EImax oli yleensä alhaisempi potilailla, joilla oli primaarinen nefroottinen oireyhtymä, saavuttamatta tilastollista merkitsevyyttä (kuva 7h). Isotoniteetin parametrit SS1/2, Omin, Ohyper ja EImax eivät olleet merkittävästi erilaisia terveiden kontrollien, primaaristen nefroottisten potilaiden ja pitkälle edennyttä CKD:tä sairastavien potilaiden välillä (täydentävä kuva S8A–D).

Cistanche-edutmunuaiset ja apua CKD: n kanssa.
KESKUSTELU
Tämä tutkimus paljastaa uusia patofysiologisia mekanismeja, jotka johtavat munuaissairauteen liittyvään anemiaan 2 hiiren paletuaarisessa mallissamunuaistautijoilla on vaikeasti heikentynytmunuaisten toiminta. Tutkimuksemme osoittaa, että näissä malleissa anemia on seurausta lyhentyneestä RBC-eliniästä, jonka laukaisee altistuminen PS: lle ja nopeutetulle fagosyyttiselle puhdistumalle. Kiehtovaa kyllä, anemia näillä hiirillä kehittyi stimuloidusta erytropoieesista huolimatta, mikä viittaa siihen, että RBC:n eliniän lyheneminen lisääntyneen RBC-solukuoleman kautta saattaa olla vaihtoehtoinen selitys näille löydöksille. Toisin kuin CKD-potilailla, joilla oli anemia (kuva 77), molemmille hiirimalleille oli ominaista lisääntynyt plasman EPO-pitoisuus. Tämän voidaan olettaa säilyvän EPO:n erityskyvyn säilyttämisellä näissä malleissa, jotka todennäköisesti säästävät munuaisten interstitiumissa sijaitsevat EPO:ta erittävät solut. Lisääntynyt EPO-eritys näissä malleissa ei kuitenkaan mitätöi johtopäätöstä, jonka mukaan RBC-solukuolema on merkittävä tekijä munuaissairauksiin liittyvän anemian patogeneesissä. Päinvastoin, erytropoieesin stimulointia lisääntyneellä EPO-erityksellä voidaan pitää kompensoivana mekanismina lisääntyneelle RBC-kuolemalle, joka johtuumunuaisten vajaatoimintanäissä malleissa. Näiden linjojen mukaisesti äskettäin havaittiin lisääntynyttä ekstramedullaarista erytropoieesia, jolla on lisääntynyt pernan tilavuus, toisessa proteiinihiirimallissa, jolla oli anemia.38
Potilailla, joilla oli proteinurinen CKD ja samanaikainen anemia, havaitsimme myös lisääntyneen prosenttiosuuden PS-altistuvista RBC:istä sekä korkeammat reaktiivisten happilajien ja keramidin pitoisuudet. Tämä viittaa siihen, että nopeutettu RBC-kuolema saattaa olla mukana munuaissairauksiin liittyvän anemian patogeneesissä ihmisen CKD: ssä. Plasman EPO-pitoisuudet ja retikulosyyttien tuotantoindeksi eivät nousseet aneemisilla CKD-potilailla, mikä viittaa vähentyneeseen erytropoieesiin, jonka yhdessä RBC-kuoleman kanssa odotetaan pahentavan munuaissairauksiin liittyvää anemiaa. Syyt EPO: n munuaisen erityksen menetykseen ihmisen CKD: ssä ovat edelleen epäselviä. On huomattava, että vaikka kaikilla potilailla, joilla oli normaali GFR, ei ollut anemiaa, ne, joilla oli alentunut GFR, olivat kaikki aneemisia, mikä viittaa pitkäaikaisen ja pitkälle edenneen CKD: n vaikutukseen. Erityisesti CKD: n suhteellinen EPO-alijäämä voidaan voittaa käyttämällä uutta prolyylihydroksylaasi-inhibiittoreiden luokkaa,39viittaamalla häiriintyneeseen hapen tunnistukseen mahdollisena syynä EPO: n hyposektioon.

Cistancheparantaamunuaisten toimintas ja apua CKD: n kanssa.
Tietomme osoittavat heikentyneen RBC-muodonmuutoksen molemmissa proteiinin nefropatian hiirimalleissa, jotka voivat liittyä suoraan kohonneisiin sytoplasmisiin Ca2þ-tasoihin.40Yhdessä nämä mekanismit voisivat toimia yhdessä helpottaakseen RBC-solukuoleman induktiota ja vanhenevien ja loukkaantuneiden RBC:iden poistamista verenkierrosta.15Lisäksi havaitsimme aineenvaihdunnan uudelleenohjelmoinnin näissä soluissa, mikä viittaa oksidatiiviseen stressiin ja kalvon lipidien uudelleenmuotoiluun. Vaikka Aitoustodistusta ja asyyli-haitta-aitoustodistusta ei mitattu suoraan näissä näytteissä, karnitiinipalmititoyylitransferaasi muuntaa ne aktiivisesti RBC:issä asyylikarnitiineiksi asyylikarnitiinitransferaasin avulla.36Jälkimmäisen yhdisteluokan kertyvät tasot osoittavat näiden mekanismien aktivoitumista nefropatiassa, koska näitä metaboliitteja ei kuljeteta helposti RBC-kalvojen läpi.41Lisätukena havaitsimme kertymistä molempiin Aitoustodistuksen esiasteiden malleihin, mukaan lukien pantotenaatti, joka otetaan käyttöön42ja metaboloitunut43RBC:iden avulla, samanaikaisesti vapaiden rasvahappojen lisäämisen ja vapaan karnitiinin vähentämisen kanssa. Mielenkiintoista on, että havaitsimme aiemmin, että nämä muutokset tapahtuvat yhdessä solunsisäisen Ca2þ: n suprafysiologisten tasojen kanssa.16Vaikka nämä tulokset on saatu ex vivo - raportoimme tässä samanlaisista vasteista in vivo. Lisäksi asyylikarnitiinit kykenevät suoraan moduloimaan kalvon ominaisuuksia44ja korreloi RBC-muodonmuutoksen kanssa,45, sekä osmoottinen ja oksidatiivinen hemolyysi.46Taivuttamaton vapaa karnitiini edistää kalvon muodonmuutosta välittämällä kalvoproteiinien välisiä vuorovaikutuksia.47Havaintomme karnitiinitasojen merkittävästä vähenemisestä nefropatiaa sairastavien hiirten RBC-yhdisteissä, oletettavasti asyylikarnitiinien muodostumisen lisääntyneen kulutuksen vuoksi, voivat vaikuttaa samanaikaisesti havaitsemiemme reologisten parametrien heikentymiseen.
Tuloksemme viittaavat yleisiin mekanismeihin, jotka johtavat RBC-kuolemaan hiirillä, joilla on sekä DIN- että podosiinipuutos, mikä voi liittyä sekä nefroottisen alueen proteinuriaan että, mikä tärkeintä, vakavanmunuaisten vajaatoimintahiirimalleissa, joita tarkkaillaan päivästä 20 alkaen. Ihmisillä pitkälle edennyt CKD, jolla on alentunut GFR, on vahva anemian ennustaja,48ja RBC-kuoleman stimulointi voi liittyä ureemiseen miljööseen. On tunnustettava, että pitkälle edenneessä CKD: ssä monet tekijät ja häiriöt saattavat tulla esiin ja edistää munuaissairauksiin liittyvää anemiaa. Raskaan proteinurian osuus RBC-kuoleman stimulointiin on edelleen epäselvä, mutta vaikka sitä ei ole todistettu, siihen voi liittyä virtsaan menetettyjä tekijöitä, kuten transferriini tai muut RBC-aineenvaihduntaa säätelevät tekijät.49Toistaiseksi munuaissairauksiin liittyvän anemian nykyinen hoito keskittyy erytropoieesin lisäämiseen raudan tai EPO-substituution avulla,50käyttämällä suun kautta otettavia hypoksia-indusoituvia tekijäproteiinin stabilointiaineita,51tai suun kautta tai i.v. rautaa.52Nämä hoidot eivät kuitenkaan ota huomioon lisääntynyttä RBC-kuolemaa. Aiemmassa poikkileikkaustutkimuksessa hemodialyysi- ja peritoneaalidialyysipotilailla havaitsimme, että potilaita, joilla oli suurempi osuus PS:tä altistavista RBC:istä, hoidettiin suuremmilla EPO-annoksilla.14Siksi RBC-solukuoleman paraneminen lupaa olla mahdollinen terapeuttinen lähestymistapa munuaissairauksiin liittyvän anemian hoidossa. Tässä yhteydessä erilaisten farmakologisten aineiden inhiboiva vaikutus RBC-solukuolemaan53 edellyttää lisätutkimuksia ihmisillä ja eläimillä.
Yhteenvetona voidaan todeta, että muuttunut solujen aineenvaihdunta edistää RBC-toimintahäiriötä, lisääntynyttä RBC-kuolemaa ja siten anemiaa proteinurisen CKD: n hiirimalleissa huolimatta kohonneista seerumin EPO-tasoista. Tämän tutkimuksen tulokset voivat osittain selittää CKD: hen liittyvät anemian mekanismit ihmisillä.

Cistanche Etujamunuaisten toiminta ja apu CKD: n kanssa.
PALJASTAMINEN
Vaikka ADA ja TN eivät liity artikkelien sisältöön, ne ovat Omix Technologies, Inc:n perustajia. Kaikki muut kirjoittajat eivät ilmoittaneet kilpailevia etuja.
TIETOJEN SELOSTE
Tiedot asetetaan saataville kohtuullisesta pyynnöstä.
TUNNUSTUKSIA
Kirjoittajat tunnustavat Andrea Janessan asiantuntevan teknisen avun. Näitä tutkimuksia tuettiin Saksan tutkimussäätiön apurahalla RB:lle (BI 2149/2-1) ja FA:lle (AR 1092/2-2). LS:ää tuki Tübingenin yliopiston lääketieteellisen tiedekunnan Interdisziplinäres Zentrum für Klinische Forschung (IZKF) -apuraha. SMQ: ta tuettiin Kanadan veripalvelun resursseilla. Kanadan hallituksen rahoituksen ehtona tämän raportin on sisällettävä lausunto "Tässä esitetyt näkemykset eivät välttämättä edusta Kanadan liittohallituksen näkemystä".
KIRJOITTAJAN KIRJOITUKSET
RB ja FA suunnittelivat tutkimuksen. Tiedonkeruun suorittivat RB, TN, MG, TD, DE, MW, LS, MX, JMB, MZK, KO, LK, IG-M ja BF.
Tilastollisia analyysejä suorittivat RB, TN, MG, TD, LS, JMB, LK, IG-M ja ADh; ja luvut tuottivat RB, TN, MZK, IG-M, LQ- M, BF ja ADh. RB, TN, ADA, MG, BNB, LS, AS, TB, MS, ALB, FG, SMQ,
ja FA tulkitsi tiedot. Käsikirjoituksen ovat kirjoittaneet, tarkistaneet ja muokanneet RB, TN, ADA, MG, BNB, TB, ALB, FG, SMQ ja FA.
LISÄMATERIAALI
Täydentävä tiedosto (PDF)
Täydentävät materiaalit ja menetelmät.
Kuvio S1. Tutkimusten kokeellinen suunnittelu 129S1/SvImJ- ja Nphs2Dipod-hiirillä.
Kuvio S2. Podosiinin ilmentymisen ja nefroottisen oireyhtymän tunnusmerkkien poistaminen Nphs2Dipod-hiirillä.
Kuvio S3. Vähentynyt punasolujen eloonjäämisaste kokeellisessa nefroottisessa oireyhtymässä Nphs2Dipod-hiirillä.
Kuvio S4. Muuttunut morfologia ja punasolujen muodonmuutosten väheneminen Nphs2Dipod-hiirillä.
Kuvio S5. Metabolomiikka osoittaa oksidatiivisen stressin kertymistä ja kalvon lipidien uudistamisen aktivoitumista punasoluissa Nphs2Dipod-hiirillä.
Kuvio S6. Metabolomiikka osoittaa muuttunutta aineenvaihduntaa punasoluissa, jotka on saatu 129S1/SvImJ-hiiristä.
Kuvio S7. Metabolomiikka osoittaa muuttunutta aineenvaihduntaa punasoluissa, jotka on saatu Nphs2Dipod-hiiriltä.
Kuvio S8. Leikkausstressi puolella punasolujen (RBC) suurimmasta muodonmuutoksesta ja RBC-osmoottisesta herkkyydestä eivät eroa merkittävästi primaarisessa nefroottisessa oireyhtymässä ja pitkälle edenneissä potilailla, joilla on krooninen munuaissairaus (CKD).
VIITTAUKSET
1. Finkelstein FO, Tarina K, Firanek C, ym. Terveyteen liittyvä elämänlaatu ja hemoglobiinitasot kroonisia munuaissairauksia sairastavilla potilailla. Clin J Am Soc Nephrol. 2009;4:33–38.
2. Efstratiadis G, Konstantinou D, Chytas I, ym. Sydän-munuaisanemian oireyhtymä. Hippokratia. 2008;12:11–16.
3. Staples AO, Wong CS, Smith JM jne. Anemia ja sairaalahoidon riski lasten kroonisessa munuaissairaudessa. Clin J Am Soc Nephrol. 2009;4: 48–56.
4. Kurella Tamura M, Vittinghoff E, Yang J, ym. Anemia ja kroonisen munuaissairauden kognitiivisen heikkenemisen riski. BMC Nephrol. 2016;17:13.
5. Toft G, Heide-Jørgensen U, van Haalen H, ym. Anemia ja kliiniset tulokset potilailla, joilla on ei-dialyysistä riippuvainen tai dialyysistä riippuvainen vaikea krooninen munuaissairaus: tanskalainen väestöpohjainen tutkimus. J Nephrol. 2020;33:147–156.
6. Geddes CC. Munuaisten anemian patofysiologia. Nephrol Dial -elinsiirto. 2018;34:921–922.
7. Artunc F, Risler T. Seerumin erytropoietiinipitoisuudet ja vasteet anemiaan potilailla, joilla on krooninen munuaissairaus tai ei. Nephrol Dial -elinsiirto. 2007;22:2900–2908.
8. Erslev AJ, Besarab A. Erytropoietiini kroonisen munuaisten vajaatoiminnan anemian patogeneesissä ja hoidossa. Suom Lääkäril 1997;51:622–630.
9. Wish JB, Aronoff GR, Bacon BR, et ai. Positiivinen rautatasapaino kroonisessa munuaissairaudessa: kuinka paljon on liikaa ja miten kertoa? Olen J Nephrol. 2018;47:72–83.
Howard RL, Buddington B, Alfrey AC. Virtsan albumiini, transferriini ja raudan erittyminen diabeetikoilla. Suom Lääkäril 1991;40:923–926.
JA jne.