Nanomaitoproteiini-limakompleksit: karakterisointi ja syövänvastainen vaikutus, osa 1
Mar 19, 2022
Lisätietoja saat ottamalla yhteyttätina.xiang@wecistanche.com
Abstrakti:syövän vastainenLuonnonyhdisteiden aktiivisuus on viime aikoina houkutellut monialaista tutkimusta. Tässä tutkimuksessa tutkittiin maitoproteiinien (MP) kompleksoitumista Isabgol-kuorikasvien (IHM) ja Ziziphus Spina Christi -liman (NabM) kanssa. Tässä yhteydessä mitattiin maitoproteiini-limakompleksien (MPMC) fysikaalis-kemiallisia ominaisuuksia, mukaan lukien pH, Carrin indeksi, vesiliukoisuus ja veden imeytymisindeksit, ja virtauskäyttäytymistä tutkittiin. Lisäksi aminohappoprofiili, proteiinien sulavuus sekä fenoli- jaflavonoiditMPMC:n sisältö tutkittiin ja kompleksien mikrorakenne visualisoitiin transmissioelektronimikroskoopilla. Theantioksidanttija MPMC:n syövänvastaiset tehot kahta syöpäsolulinjaa, ihmisen maksasyöpää HEPG-2 ja rintasyöpää MCF-7 vastaan, verrattuna kahteen normaaliin solulinjaan, nimittäin Bj-1 ja MCF{{ 3}}F, testattiin neutraalin punaisen sisäänoton määrityksellä. Tulokset paljastivat, että MPMC:llä oli puhdistusaktiivisuutta DPPH-, ABTS- ja HS-radikaaleja vastaan. Lisäksi MPMC pystyy estämään oksidatiivisen stressin aiheuttaman DNA-vaurion Type-Fentonin reaktiossa. Neutraalin punaisen määrityksen tulokset osoittivat sekä HEPG-2:n että MCF-7:n merkittävää kasvun estymistä, kun taas Bj-1:a ja MCF-12F:tä vastaan ei havaittu merkittävää sytotoksista vaikutusta. RT-qPCR-tulokset osoittivat MPMC:n stimuloiman apoptoosin, mikä paljastui pro-apoptoosia edistävien geenimarkkerien Caspase-3, p53, Bax, lisääntyessä. Sillä välin apoptoosin vastainen Bcl-2-geeni väheni. MPMC:llä käsitellyissä normaaleissa solulinjoissa ei kuitenkaan havaittu merkittävää eroa. Yhteenvetona voidaan todeta, että MPMC:tä voidaan pitää lupaavana syövän vastaisena kokonaisuutena, jota voidaan käyttää sellaisten uusien syöpälääkkeiden kehittämisessä, joilla on vertailukelpoinen aktiivisuus ja minimaaliset sivuvaikutukset verrattuna perinteisiin syövän kemoterapioihin. .
Avainsanat: maitoproteiinit; Isabgol-kuoren kasvilima; Nabeq-kasvi; maitoproteiinien kasvilimakompleksit; syövän vastainen aktiivisuus
Napsauta saadaksesi lisätietoja tuotteista
1. Esittely
Syöpäon ensisijainen kuolinsyy ympäri maailmaa: vuonna 2020 kuolee noin 10 miljoonaa [1]. Varhainen diagnoosi ja uusien hoitomuotojen kehittäminen on ainoa toivo voittaa syöpä. Perinteiset syövänhoidot, kuten kemoterapia ja sädehoito, ovat suhteellisen kalliita ja niihin liittyy merkittäviä sivuvaikutuksia.
Siksi tieteellinen ja tutkimus kiinnostaa sellaisten luonnollisten yhdisteiden (eli proteiinien, polysakkaridien ja polyfenolien) hyödyntämistä lähteistään, joilla on syöpää ehkäisevää potentiaalia, koska niillä katsotaan olevan vähemmän myrkyllisiä sivuvaikutuksia verrattuna tavanomaisiin hoitoihin.
Polysakkariditkasviperäisistä lähteistä on viime aikoina kiinnitetty yhä enemmän huomiota niiden bioaktiivisten ominaisuuksien vuoksi [2,3]. Lukuisat tutkimukset ovat olleet kiinnostuneita bioaktiivisten polysakkaridien ja polyfenolien eristämisestä luonnollisista kasvilähteistä, kuten hedelmistä, vihanneksista, viljoista ja yrteistä niiden hyödyllisten farmakologisten vaikutusten vuoksi [4].
Plantago ovata (Psyllium tai Isabgol) ja Ziziphus Spina-Christi (Nabeg tai Sidr) ovat tunnettuja bioaktiivisten polysakkaridien lähteitä. IHM ja NabM valittiin lupaaviksi bioaktiivisiksi materiaaleiksi. Aiemmat tutkimukset ovat osoittaneet, että IHM- ja NabM-kompleksit maitoproteiinien kanssa paransivat maksan toimintaa ja vähensivät sydän- ja verisuonisairauksien riskiä[5]. Isabgol-kuori on osoittautunut tehokkaaksi ripulin, ummetuksen, haavaisen paksusuolitulehduksen, ärtyvän suolen oireyhtymän, hyperkolesterolemian ja diabeteksen hoidossa. Lisäksi isabgol-kuoren syöpää estävän vaikutuksen paksusuolen syöpää vastaan katsottiin johtuvan sen kuitupitoisuudesta, joka vähentää sen vaikutuksia lyhentämällä kulkuaikaa. Tämä johtaa suoliston mikroflooran aiheuttamaan sappiaineenvaihdunnan vähenemiseen, sappihappojen laimenemiseen ulosteen täytteellä, mikrobien sappihappojen aineenvaihdunnan muuttumiseen kuidun fermentaatiosta, pH:n alenemiseen ja lyhytketjuisten rasvahappojen tuotantoon tai suoraan sitoutumiseen sappihappoja ja siten estää niiden aineenvaihduntaa [6]. Ziziphus Spina-Christin tärkeimmät biologisesti aktiiviset komponentit ovat C-vitamiini, fenolit, flavonoidit ja triterpeenihapot. Sen bioaktiivisuuteen kuuluvat syövänvastaiset, antibakteeriset, diabeteksen vastaiset, antiproliferatiiviset ja antioksidanttivaikutukset [7. Isabgol-kuorta ja Nabeq-hedelmiä käytetään Isabgol-kuorikasvien (IHM) ja Nabeq-liman (NabM) valmistukseen [5].
Toisaalta proteiinipohjaiset syövän hoidot ovat herättäneet kasvavaa kiinnostusta avainominaisuuksien, kuten alhaisen sytotoksisuuden, vahvan spesifisyyden ja muuntelun helppouden vuoksi [8]. Sen lisäksi, että maitoproteiinit täyttävät välttämättömien aminohappojen ravitsemukselliset tarpeet, ne kuuluvat biologisiin makromolekyyleihin, joilla on monia toiminnallisia ominaisuuksia, kuten antioksidanttisia, immunomoduloivia, diabeettisia, antimikrobisia ja syöpää ehkäiseviä ominaisuuksia [9,10]. Esimerkiksi maitotuotteista peräisin olevien peptidien (eli -kaseiinista ja 1-kaseiinifragmenteista 90-95 ja 90-96[Arg90-Tyr-Leusta eristettyjen -kasomorfiinien Naudanmaidosta tunnistettu -Gly-Tyr-Leu95-(Glu96)]) tukee oletusta, jonka mukaan maitoproteiinit eivät ole pelkästään ravitsevia, vaan niillä on myös potentiaalia syövän ehkäisyyn ja hoitoon [11,12]
Maitoproteiinien ja polysakkaridien, kuten maitoproteiini-kitosaani-kompleksin, välistä kompleksia tuotettiin aiemmin yrityksenä parantaa niiden luonnollisten komponenttien toiminnallisia ominaisuuksia [13]. Saatavuuden ja valmistuksen helppouden vuoksi tällaisia komplekseja voidaan käyttää halvempien syövänvastaisten hoitojen kehittämisessä. Tällaiset terapeuttiset aineet ovat halvempia ja niillä on verrattavissa oleva aktiivisuus nykyisin käytettyjen kemoterapeuttisten aineiden kanssa.
Ei-kovalenttinen sitoutuminen hydrofobisten ja sähköstaattisten vuorovaikutusten kautta ovat ensisijaisia tekijöitä maitoproteiinien assosiaatiossapolysakkarideja[14]. Lisäksi proteiinit osoittavat yllättävää joustavuutta vuorovaikutuksessa muiden komponenttien kanssa pH-alueella 2-11. Tietyssä pH:ssa proteiinin pintareaktiivisuus kasvaa proteiinirakenteen avautuessa [15].
Tässä yhteydessä ryhmämme on viime aikoina keskittynyt maitoproteiinikompleksien toiminnalliseen rooliin ihmisten terveydelle. Maitoproteiinikomplekseilla IHM:n tai NabM:n kanssa on kuitenkin ollut antihyperlipideemisiä ja maksaa suojaavia ominaisuuksia [9]. Siten aikaisempien tutkimusten perusteella oletettiin, että maitoproteiini-polysakkaridi-komplekseilla voi olla mielenkiintoista syövänvastaista aktiivisuutta. Lisäksi missään julkaisussa ei ollut suoritettu tutkimusta maitoproteiinikompleksien syövänvastaisesta vaikutuksesta IHM:n ja NabM:n kanssa. Siksi tämän tutkimuksen päätavoitteena oli karakterisoida vastatuotettujen maitoproteiinikasvilimakompleksien fysikaalis-kemiallisia ominaisuuksia, mukaan lukien näiden kompleksien aminohappoprofiili ja toiminnalliset ominaisuudet. Lisäksi tutkittiin maitoproteiinikompleksien IHM:n ja NabM-liman kanssa kahden ihmisen syöpäsolun (MCF7 ja HEPG2) syöpää vastaan verrattuna ei-syöpäsolulinjoihin (Bi-1 ja MCF{7}}F). ). Valaisimme myös tuotettujen maitoproteiinien kasvilimakompleksien toimintatapaa.

2. Tulokset ja keskustelu
2.1. Fourier-muunnos infrapunaspektroskopia (FTIR).
IHM:n, MP:n ja MP/IHM:n infrapunaspektrit on kuvattu kuviossa 1A. IHM-spektri osoitti arabinoksylaanien tyypillisen vyöhykkeen kohdassa 100-1200 cm-1 ja amidi I- ja amidi II -ryhmien vyöhykkeet kohdissa 1550 ja 1650 cm-1. MP-spektri näyttää nauhat kohdissa 1700-1600 ja 1200-900 cm-I, jotka vastaavat amidi I:tä (pääasiassa proteiinien C=O-venytystä) ja maidon hiilihydraatteja [16]. Edellä mainitut IHM:n ja MP:n piikit varattiin IHM/MP-kompleksin spektriin. Samalla tavalla NabM:n galakturonihapon tyypilliset juovat säilyivät NabM/MP-kompleksin spektrissä (kuvio 1B). Tämä osoittaisi kemiallisen vuorovaikutuksen puuttumisen polysakkaridikasvien ja MP:n välillä ja vahvistaisi siten ehdotetun sähköstaattisen vetovoiman mekanismin MP:n ja polysakkaridien (IHM ja NabM) välillä. Tällaiset havainnot ovat linjassa Vukic et al:n havaintojen kanssa, jotka raportoivat kompleksin muodostumisesta heramaitoproteiinien ja pektiinin välillä sähköstaattisten ja hydrofobisten vuorovaikutusten kautta, mikä johti kompleksin hyvään konsistenssiin [17].

2.2. MP:n ja MPMC:n fysikaalis-kemialliset ja toiminnalliset ominaisuudet
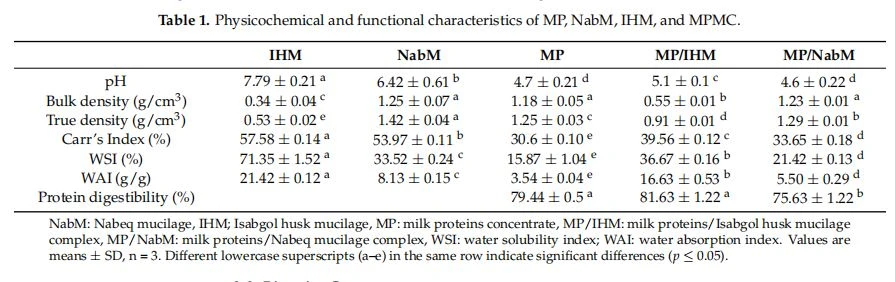
Bulkkitiheyden (BD), koputustiheyden (TD), Carrin indeksin ja pH-mittausten arvot on lueteltu taulukossa 1. MP:n BD ja TD olivat korkeammat kuin IHM, ja IHM:llä oli testatuista näytteistä pienin bulkkitiheys ja painotiheys. . Samoin MP/IHM-kompleksilla oli merkittävästi (s<0.05) lower="" bulk="" and="" tapped="" density="" compared="" to="" mp/nabm.="" the="" obtained="" results="" indicated="" that="" the="" distribution="" and="" solubility="" of="" mp="" have="" been="" improved="" by="" complexation="" with="" the="" ihm.="" carr's="" index="" is="" frequently="" used="" as="" an="" indication="" of="" the="" flowability="" of="" powders.="" the="" results="" in="" table="" 1="" show="" that="" carr's="" index="" of="" mpmc="" was="" significantly="" lower="" than="" ihm="" which="" indicated="" that="" nabm="" improved="" the="" flowability="" of="" mp.="" this="" was="" probably="" due="" to="" the="" lower="" carr's="" index="" value="" of="" mp(30.6±="" 0.10%)="" compared="" to="" ihm="" and="" nabm="" (57.58±0.14="" and="" 53.97±0.11%,="" respectively)which="" are="" vicious.ihm="" is="" alkaline="" (7.79="" ph)="" while="" mp="" and="" the="" complexes="" with="" polysaccharide="" mucilage="" were="" slightly="" acidic="" which="" came="" in="" accordance="" with="" previously="" reported="" results="">
WSI ja WAI ovat tärkeitä toiminnallisia ominaisuuksia elintarviketeknologiassa. Taulukko 1 osoittaa, että MP:n WSI ja WAI lisääntyivät merkittävästi kompleksoinnin jälkeen IHM:n ja NabM:n kanssa. Tämä johtui todennäköisimmin siitä, että Isabgol-pohjaiset materiaalit ovat erittäin vesiliukoisia ja niillä on sakeuttamisvaikutus riittävien vesimäärien lisäämisen jälkeen [19]. Lisäksi Qaisrani et ai. raportoi, että Isabgol-kuoren arabinoksylaanien vedenpidätyskyky on jopa kymmenkertainen kuivapainoon verrattuna [20]. Lisäksi MP/IHM:llä on korkeampi WSI ja WAI kuin MP/NabM:llä, koska IHM:llä on korkeampi WSI ja WAI kuin NabM:llä. Lisäksi MPMC:n WSI-prosentin nousu MP:hen verrattuna johti kohdeaktiivisten komponenttien dispergoituvuuden lisääntymiseen käytettäessä niitä terapeuttisissa kysymyksissä [21]. Tämä oli selvää syövän vastaisissa tuloksissa, jotka osoittivat, että näillä komplekseilla on sytotoksinen vaikutus kuin MP:llä.
2.3. Bioaktiiviset komponentit
2.3.1. PHM:n ja NabM:n fenoliyhdisteet
Ruoka sisältää erittäin tärkeitä bioaktiivisia yhdisteitä (eli fenolia ja flavonoideja), jotka toimivat antioksidantteina ja syöpää ehkäisevinä voimina. HPLC-analyysi vahvisti ja kvantifioi monien fenoliyhdisteiden läsnäolon Nab:ssa ja IHM:ssä, kuten kuvassa 2 on esitetty. Tulokset osoittavat useiden biologisesti aktiivisten yhdisteiden, kuten gallushapon (177,96 mg/kg), katekolin (13,87 mg/kg) suuren pitoisuuden. p-hydroksibentsoehappo (24,02 mg/kg), katekiini (5,93 mg/kg) ja rutiini (123,70 mg/kg) PHM-uutteessa ja katekoli (410,72 mg/kg) p-hydroksibentsoehappo (426,71 mg/kg) (72,05 mg/kg) rutiini (1750,57 mg/kg) ja rosmariini (1771,72 mg/kg) NabM:ssä (kuvio 2A, B). Näiden yhdisteiden pitoisuus on erittäin tärkeä terveydelle. Fenoliyhdisteiden syöpää estävä vaikutus on raportoitu aiemmin. Tämä vaikutus johtui pääasiassa näiden yhdisteiden antioksidanttisesta vaikutuksesta.
2.3.2. MP:n ja MPMC:n fenoli-, flavonoidi- ja antioksidanttiaktiivisuus
Useat raportit ovat osoittaneet, että yhdisteillä, joilla on antioksidanttisia ominaisuuksia, on enimmäkseen syöpää estävää vaikutusta[22]. Kokonaisfenolipitoisuus (TP) ja kokonaisflavonoidipitoisuus (TF) määritettiin NabM:stä, IHM:stä, MP:stä ja niiden komplekseista (kuvio 3A, B). Tulokset osoittivat, että TP ja TF olivat korkeampia NabM:ssä ja MP/NabM:ssä verrattuna IHM:ään ja MP/IHM:ään. TP- ja TF-pitoisuudet olivat kuitenkin merkittävästi alhaisemmat MP:ssä verrattuna MPC:hen. Nämä tulokset olivat yhtäpitäviä Singhin et al:n raportoimien tietojen kanssa.[23] jotka havaitsivat, että NabM:n TP ja TF olivat 1,6 GAE mg/100 g kuivapainoa ja 47 mg CE/100 g kuivapainoa, vastaavasti. MP/NabM- ja MP/IHM-kompleksit osoittivat merkittävää kasvua, 309 prosenttia ja 59 prosenttia TP:ssä ja 476 prosenttia ja 123 prosenttia TF:ssä verrattuna MP:hen. MP:n konjugointi IHM:n ja NabM:n kanssa johti vastaavasti 23 prosentin ja 36 prosentin TPC:tä vastaavan IHM:n ja NabM:n menettämiseen. TF väheni 44 prosenttia IHM:ssä ja 46 prosenttia NabM:ssä kompleksoituessaan MP:n kanssa. Tämä johtui todennäköisesti MP:n alhaisesta TP:stä ja TF:stä.

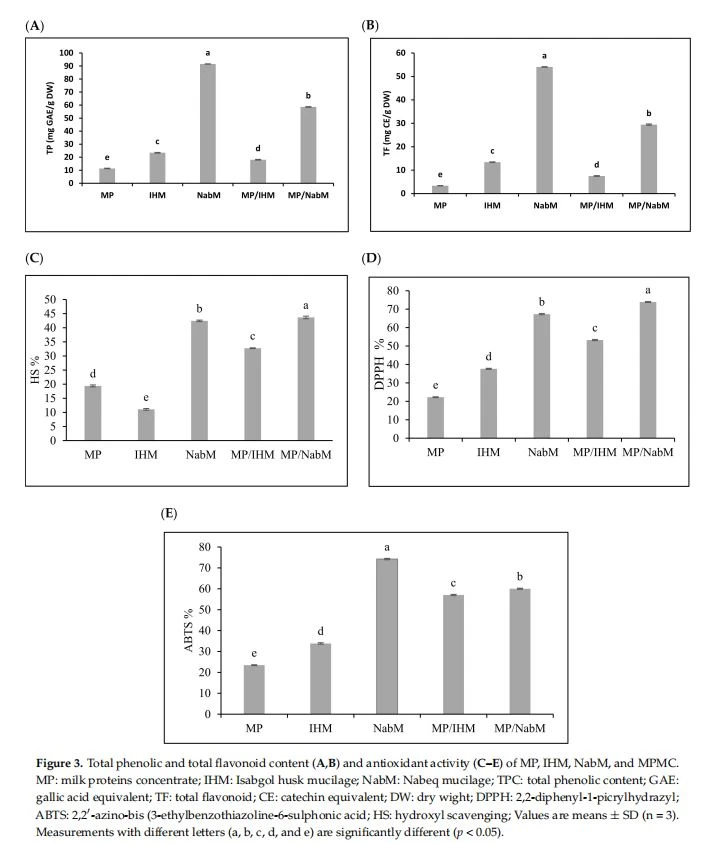
MP/IHM:n ja MP/NabM:n mahdollinen radikaaleja poistava aktiivisuus verrattuna MP:hen, jossa käytetään DPPH:ta, ABTS:ää ja HS:ää, on havainnollistettu kuviossa 3C-E. Kolmen antioksidantin aktiivisuudesta saaduilla tiedoilla oli samanlainen suuntaus, mikä osoitti, että NabM:llä oli korkeampi antioksidanttiaktiivisuus kuin IHM:llä, ja tämä on yhteydessä fenoli- ja
flavonoidien sisältö. MP:n antioksidanttikapasiteetti lisääntyi kompleksoinnin jälkeen NabM:n ja IHM:n kanssa. ABTS-määritystä lukuun ottamatta NabM:n antioksidanttiaktiivisuus lisääntyi konjugoituessa MP:n kanssa. Antioksidanttiaktiivisuus osoitti, että MPMC:llä oli korkeampi antioksidanttiaktiivisuus verrattuna MP:hen. Hypoteesimme viittaa mahdolliseen vuorovaikutukseen MP:n ja polysakkaridien välillä, mikä johtaa mahdollisen antioksidanttiaktiivisuuden saavuttamiseen, kuten Li et ai. [24]. Aiemmin on raportoitu, että huuhtelukapasiteetin ja fenoli-/flavonoidipitoisuuden välillä on positiivinen korrelaatio 5]. Emme kuitenkaan voi sulkea pois sitä, että syntyy uusia bioaktiivisia peptidejä, jotka on rikastettu rikkiä sisältävillä aminohapoilla, mikä selittää MPMC:n korkean antioksidanttiaktiivisuuden kompleksoitumattomiin komponentteihin verrattuna. Lisäksi pienet peptidit vapautuvat herafraktioissa, mikä vaikuttaa korkeisiin antioksidanttisiin ominaisuuksiin [4]. Lopuksi fenoli- ja flavonoidipitoisuudet vaikuttavat erilaisiin syöpäsoluihin. Lisäksi näitä aktiivisuuksia ja mekanismeja havaittiin in vitro -soluviljelymäärityksissä. Fenolien antioksidantti- ja syövänvastaiset vaikutukset johtuvat aromaattisten renkaiden kaksoissidoksista ja hydroksyylisubstituutioista [25].

2.4.MP:n ja MPMC:n aminohappoprofiili
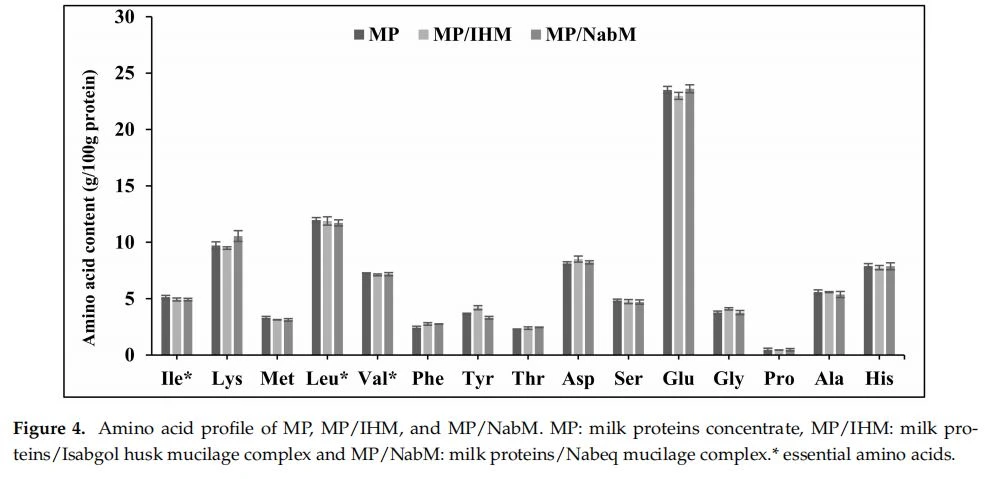
MP:n, NabM:n, MP/IHM:n ja MP/NabMaren aminohappoprofiilit on kuvattu kuvassa 4. MP:n ja sen IHM:n ja NabM:n kanssa muodostuneiden kompleksien aminohappoprofiileissa ei ollut merkittäviä eroja. Tämä osoitti, että MP:n ei-kovalenttinen vuorovaikutus polysakkaridikasvien kanssa ei muuttanut maitoproteiinien koostumusta. Tulokset osoittavat korkean glutamiinihappopitoisuuden MP:ssä ja MPMC:ssä (Kuva 4) [26].
2.5. MP ja MPMC:iden reologiset ominaisuudet
2.5.1 Näennäinen viskositeetti
Kuva S1 esittää proteiininäytteiden viskositeetin eri kierroslukuarvoilla. IHM:llä ja NabM:llä oli korkea viskositeetti hitaalla pyörimisellä, mutta viskositeetti laski merkittävästi pyörimisnopeuden kasvaessa. Nämä havainnot olivat sopusoinnussa Chenin ja Chen kanssa, jotka kirjasivat, että vihreän laverin (Monostroma iridium) vesiliukoisen kasvin näennäinen viskositeetti väheni nostamalla leikkausnopeutta [27].
Tulokset kuviossa S1 osoittavat myös, että MP:n kompleksoituminen IHM:n ja NabM:n kanssa johti MP:n näennäisen viskositeetin merkittävään nousuun (p pienempi tai yhtä suuri kuin 0,05). Tämä voidaan johtua IHM:n (hydrokolloidimateriaalin) ainutlaatuisista ominaisuuksista, jolla on viskositeettia lisäävä vaikutus [28].
2.5.2. Virtauskäyttäytyminen
Maitoproteiinien ja niiden kompleksien virtauskäyttäytyminen (leikkausjännitys/leikkausnopeuskäyrät) on esitetty kuvassa S2. Leikkausnopeuden kasvaessa leikkausjännitys lisääntyi. Muunnettaessa leikkausjännitys- ja leikkausnopeustiedot teholain yhtälöksi, virtauksen sakeusindeksin (K) ja virtauskäyttäytymisindeksin (n) arvot on esitetty taulukossa S1. IHM:llä ja MP/IHM:llä oli korkein virtauksen sakeusindeksi. Tämä saattaa johtua IHM:n vesiliukoisen kasvin korkeasta viskositeetista, joka johtuu sen suuresta kyvystä pitää vettä ja geeliytyä vesipitoisessa väliaineessa. Tulokset osoittivat myös, että IHIM:llä, NabM:llä ja MP/IHM:llä oli leikkausohennuskäyttäytymistä (ei-newtonilaiset nesteet) alhaisen n-arvon ollessa 0,25 - 0,64. Nämä tulokset olivat Ziziphus mauritianan fysikaalis-kemiallisia ominaisuuksia tutkineiden Thanatchan ja Praneen [29] mukaisia. Toisaalta MP:n n-arvo oli noin 1(0.99), mikä osoittaa Newtonin virtauksen. Samoin MP/NabM-kompleksin n-arvo oli 0,95, kuten taulukosta S1 esitetään.
2.6. MP:n ja MPMC:n differentiaalinen pyyhkäisykalorimetria
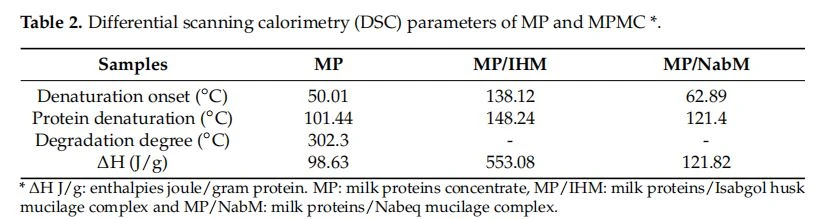
Differentiaalista pyyhkäisykalorimetriaa käytettiin MP:n ja sen kompleksien lämpöstabiiliuden tutkimiseen IHIM:n ja NabM:n kanssa. MP:n ja MPMC:n termogrammit on kuvattu kuvassa S3, ja DSC-parametrit on esitetty taulukossa 2. Havaittiin, että MP-termogrammissa ei ollut selkeää endotermistä huippua, mutta MP/IHM:lle ja MP/NabM:n laaja endoterminen huippu. Tämä johtuu todennäköisesti vapaan veden asteittaisesta eliminoitumisesta, NabM:n sulamispisteestä, hitaasta geeliytymisestä ja proteiinien denaturaatiosta [30].
Todettiin myös, että MPMC oli lämpöstabiilimpi kuin kompleksoitumaton proteiini, mikä havaittiin MP:n alhaisella denaturaatiolämpötilalla (101,44 astetta) verrattuna MP/IHM:ään ja MP/NabM:ään (148,24 ja 121,4 astetta, vastaavasti), kuten taulukossa 2 esitetään. Lisäksi MP:n hajoamislämpötilaksi kirjattiin 302,3 astetta, kun taas MPMC:n hajoamista ei havaittu lämpötilan noustessa 350 °C:seen. Nämä havainnot olivat sopusoinnussa useiden tutkimusten kanssa, joissa todettiin, että maitoproteiinien lämpöstabiilisuus lisäsi vuorovaikutusta fenoliyhdisteiden kanssa, jotka estivät proteiinien aggregaatiota [2,31].
Lämpö, joka kulkee järjestelmään tai siitä ulos reaktion aikana, on entalpia (AH). MP/IHM:n ja MP/NabM:n korkeampi entalpia verrattuna kompleksoimattoman MP:n entalpiaan saattaa johtua mahdollisesta kemiallisesta reaktiosta maitoproteiinien (heran ja kaseiinin) välillä sekä maitoproteiinien ja polysakkaridien välillä korkeassa lämpötilassa (Maillardin reaktio)[ 31.
2.7. MP:n ja MPMC:n lähetyselektronimikroskooppi (TEM).
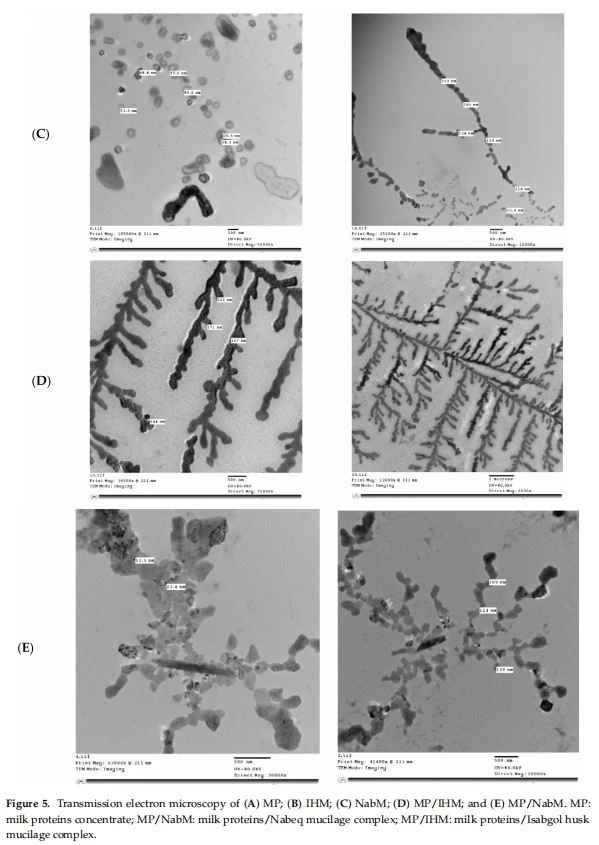
Kuvio 5 esittää IHM:n, NabM:n, MP:n ja MPMC:n mikrorakenteen. Havaittiin, että MPMC:n hiukkaskoko oli nanoalueella (114-250 nm), ja se oli pienempi kuin MP (191-300 nm) hiukkaskoko. Lisäksi MPMC:n TEM (kuvio 5D, E) paljasti muodostuneiden kompleksien haarautuneen kuvion. Tämä voidaan johtua maitoproteiinien ja polysakkaridien välisestä sähköstaattisesta vetovoimasta Goh et ai. [32]. Lisäksi MP/IHM:n suurempi haarautunut rakenne verrattuna MP/NabM:ään saattaa olla vastuussa sen korkeammasta viskositeetista, kuten kuvassa S1 esitetään.


2.8. Biologiset tutkimukset MP:stä ja MPMC:stä
2.8.1. MP:n ja MPMC:n syövänvastainen toiminta
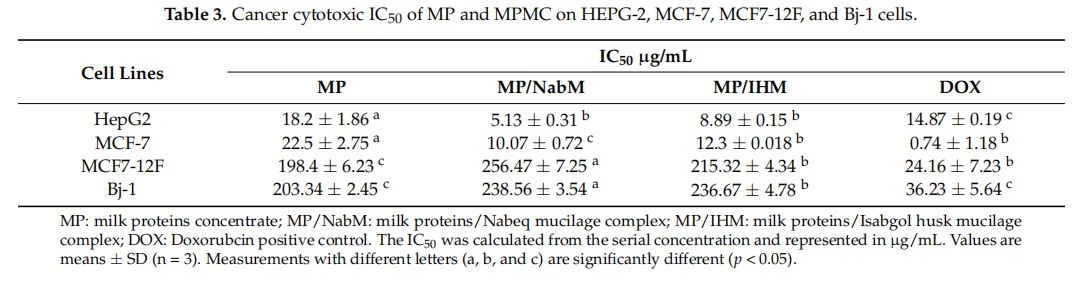
MP:n ja MPMC:n eri pitoisuuksien (1, 5, 10 ja 20 ug/ml) sytotoksinen vaikutus HepG-2- ja MCF-7-soluihin verrattuna MCF-12F- ja Bij{-soluihin {7}} normaalit solut on kuvattu kuvioissa 6 ja 7. MPMC:llä oli syövänvastaista vaikutusta HepG-2- ja MCF-7-soluihin. Kuva 6A ja B. Annosvastekäyrä osoitti solujen elinkelpoisuuden laskua vasteena korkeampiin pitoisuuksiin. Toisaalta MP:n ja MPMC:n merkittävää sytotoksista vaikutusta Bj-1- ja MCF-12F-normaaleihin soluihin ei havaittu (kuvio 6C, D). Tuloksemme osoittivat myös, että MP/NabM:llä oli suurempi syövänvastainen aktiivisuus HepG-2- ja MCF-7-syöpäsolulinjoja vastaan, IC50-arvoilla 5,13 ja 10,07 ug/ml, vastaavasti. Lisäksi MP/IHM osoitti kohtalaista sytotoksista vaikutusta syöpäsolulinjoihin verrattuna vastaaviin kontrolleihin. Kaiken kaikkiaan sytotoksiset tietomme viittaavat siihen, että MP:n kompleksoiminen IHM:n ja NabM:n kanssa lisää merkittävästi syövänvastaista aktiivisuutta verrattuna kompleksoitumattomiin maitoproteiineihin, kuten taulukosta 3 käy ilmi. Oli myös ilmeistä, että Hep G-2 -solut olivat herkempiä MP:lle ja MPMC:lle. verrattuna MCF-7-soluihin, mikä ilmenee alhaisempina IC50-arvoina.


Maitoproteiiniperäisten kasvainten vastaisten peptidien syöpää estävä vaikutus on raportoitu aiemmin. Tässä yhteydessä Jeong ja Hong [33] havaitsivat, että -laktalbumiinin trypsiinihydrolysaateilla oli sytotoksinen vaikutus ihmisen luusyöpään SJSA-1, ihmisen paksusuolensyöpään HCT 116 ja ihmisen mahasyövän NCI-N87-solulinjoihin. Havaittiin, että o-laktalbumiini on vuorovaikutuksessa solupinnan modulaattoreiden kanssa ja muuttaa solujen kasvunopeutta, solunsisäistä kalsiumia ja kalsiumin kuljetusnopeutta [34]. On syytä huomata, että naudan laktoferriini indusoi apoptoosia MCF7-soluissa annoksesta riippuvalla tavalla [35]. Lisäksi maidon kaseiini- ja heraproteiinifraktiot osoittivat kasvainten vastaisia vaikutuksia eläinmallissa sekä antiproliferatiivista aktiivisuutta in vitro [36]. Lisäksi Elzoghby et al.[37] raportoi, että kaseiininanohiukkasia voidaan käyttää hydrofobisen syöpälääkkeen, flutamidin, kapseloimiseen lääkkeen vapautumisen säätelemiseksi, sen kasvainten vastaisen aktiivisuuden parantamiseksi ja sen maksatoksisuuden vähentämiseksi.
IHIM:n ja NabM:n syöpää estävä vaikutus on raportoitu aiemmin [6,38]. MP:n ja MPMC:n sytotoksinen vaikutus voidaan katsoa johtuvan aminohappojen, kuten glutamiinin, arginiinin ja kysteiinin, läsnäolosta, joilla on raportoitu olevan syöpää estävää vaikutusta paksusuolen syöpää vastaan [39]. Nämä tulokset ovat sopusoinnussa MPMC:n korkean glutamiinihappopitoisuuden kanssa (kuva 5).
2.8.2. p53-, Bax-, kaspaasi--3- ja Bd-2-proteiinitason määritys
MPMC:n sytotoksisuusmekanismin tutkimiseksi apoptoosin merkkiproteiinien p53, Bax, kaspaasi-3 ja Bcl-2 taso määritettiin HepG-2:ssa, MCF-7 , Bj-1 ja MCF-12F-solulinjat, jotka on käsitelty MPMC:n IC:illä0 (kuva 8). Pro- ja anti-apoptoottisten markkerien taso liittyy apoptoosin induktioon syöpäsolulinjoissa [40,41]. Tulokset osoittivat, että MP/NabM ja MP/IH parantavat apoptoosia HepG-2- ja MCF-7-solulinjoissa, mutta eivät MCF-12F- ja Bj-1-solulinjoissa. Kaspaasi-3, p53, Bax nousi merkitsevästi vastaaviin kontrolleihin verrattuna (kuva 8), kun taas Bcl-2-proteiini väheni kaikissa hoidoissa. Mielenkiintoista on, että MP osoitti myös merkittävän muutoksen apoptoosiproteiinimarkkereissa. Tämä oli yhdenmukainen syövänvastaisen tutkimuksen tulosten kanssa, ja sitä voitiin kutsua useiden maitoproteiiniperäisten peptidien sytotoksiseksi vaikutukseksi, kuten edellä on käsitelty (osio 2.8.1).

2.8.3. MPMC:n suojaus DNA-vaurioilta RNH1-plasmidin oksidatiivista pilkkomista vastaan
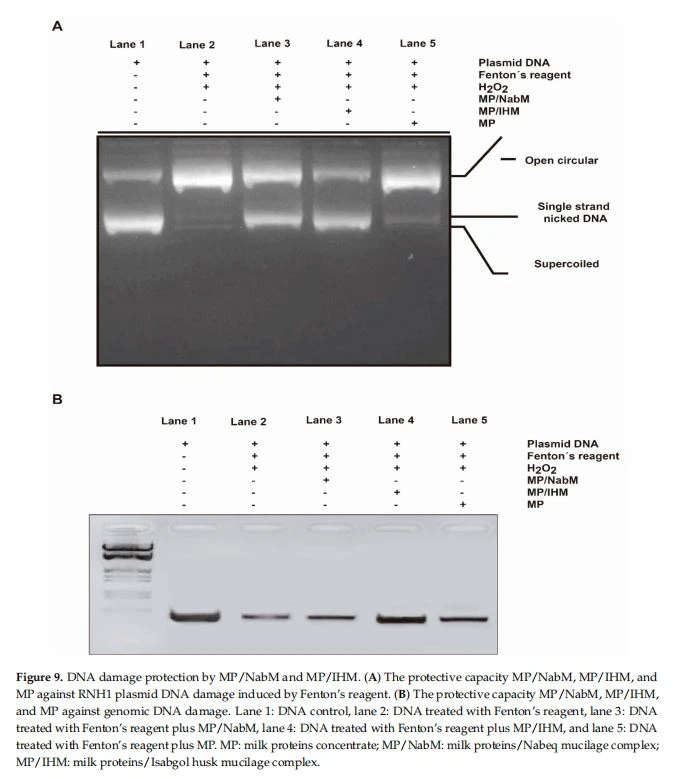
RNH1-plasmidi-DNA:lla on agaroosigeelielektroforeesissa kolme muotoa, jotka on järjestetty ylhäältä alas avoimena ympyrämäisenä, lineaarisena ja superkierteisenä pyöreänä DNA:na. Fentonin reagenssin aiheuttama oksidatiivinen stressi aiheutti DNA-vaurion. Tämän jälkeen DNA-muotojen taso muuttuu. Avoimet ympyrämäiset ja lineaariset muodot osoittavat kuitenkin DNA-vaurioita ja superkierteinen pyöreä DNA lisää suojapotentiaalia. Tässä määrityksessä testasimme, voivatko MP ja MPMC IC50-arvollaan suojata superkierteisen pyöreän muodon hajoamiselta vasteena oksidatiiviselle stressille. Tämän seurauksena sekä MP/NabM että MP/IHM osoittivat korkeaa suojauskapasiteettia, joka oli samanlainen kuin DNA-kontrolli (kaistat 3 ja 4, kuvio 9A). Toisaalta MP:llä käsitellyssä DNA:ssa ei havaittu merkittävää eroa verrattuna DNA-kontrolliin ja vain Fentonin reagenssilla käsiteltyyn DNA:han (kaista 5).
2.8.4. MPMC:n suojaus DNA-vaurioilta genomisen DNA:n oksidatiivista pilkkomista vastaan
PCR-tekniikalla tutkittiin MPMC:n suojaavia ominaisuuksia Fenton-reaktion aiheuttaman genomisen DNA-vaurion suhteen. Yleisesti ottaen DNA-vaurio vähentää tiettyjen geenien kopiomäärää, mikä tuottaa alhaisemman vyöhykkeen intensiteetin geelielektroforeesissa. Fentonin reagenssin kanssa inkuboidun veren genomisen DNA:n vyöhyketiheys MTHFR-geenin kanssa testattiin MP:n, MP/NabM:n ja MP/IHM:n IC5:t0 ja ilman niitä. Havaittiin, että MP/NabM ja MP/IHM (kaistat 3 ja 4, kuvio 9B) estivät DNA:n vaurioitumisen ja suojasivat myöhemmin MTHFR-templaatin leikkauskohtaa. Siksi elektroforeesigeelissä tuotettiin korkeampi PCR-tuotteen vyöhykkeen intensiteetti verrattuna vastaaviin kontrolleihin (kuvio 9B). Nämä tulokset osoittivat, että MPMC:n antioksidanttiaktiivisuus esti DNA-vaurioita välittävien vapaiden radikaalien tuotantoa.
2.8.5. Geeniekspressio
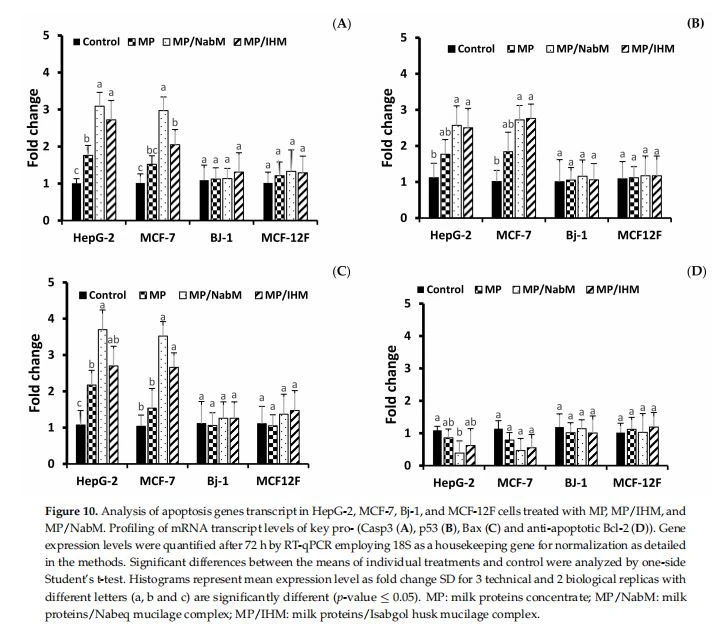
Apoptoosiproteiinimarkkerin saatujen tietojen mukaisesti RT-qPCR:n tulokset paljastivat, että HepG-2-, MCF-7-solujen inkubointi MP:n, MP/NabM:n ja MP/IHM:n kanssa aiheutti merkittävän pro- apoptoottiset mRNA-markkerit, nimittäin Casp3, p53 ja Bax, kun taas anti-apoptoottisen markkerin Bcl-2 ilmentymistaso oli merkittävästi alentunut (kuvio 10A-D). Kaspaasit ovat toimijaproteiineja, joilla on elintärkeä rooli apoptoosin käynnistämisessä ja ylläpitämisessä. Kaspaasi 3 -proteiinin lisääntynyt säätely on kuitenkin osoitus apoptoosin pääasiallisen sisäisen reitin suorittamisesta (kuvio 10A, B), jolle on tunnusomaista mitokondriokalvon romahtaminen Baxin aiheuttaman sytokromi c:n vapautumisen kanssa ja kaspaasi 9:n aktivaatio, joka johtaa myöhempi kaspaasin 3 sitoutuminen [42]. Casp3:n, p53:n ja Baxin lisääntynyt säätely sekä Bcl-2-ekspression väheneminen paljasti, että MP, MP/NabM ja MP/IHM laukaisi apoptoosin. Tässä suhteessa p53:n lisääntynyt säätely stimuloi Baxin ilmentymistä, mikä puolestaan indusoi sytokromi c:n vapautumisen, mitä seuraa kaspaasin -9 ja -3 aktivaatio. Kuitenkin Bcl-2 anti-apoptoosin tiedetään inhiboivan sytokromi c:n vapautumista [43]. Hoito johti anti-apoptoottisen markkerigeenin Bcl-2 mRNA-transkriptitason merkittäviin laskuihin johtuen MP/NabM- ja MP/IHM-hoito, joka helpottaa Baxin aiheuttamaa sytokromi c:n vapautumista ja sitä seuraavaa apoptoosia. Tässä tutkimuksessa MP/NabM välitti vakavasti apoptoosia verrattuna MP/IHM:ään ja MP:hen, kuten havaittiin (kuvio 10). MP/NabMor MP/IHM:n havaitut syövän vastaiset vaikutukset etenevät ap53-riippuvaisen apoptoosireitin moduloimisen kautta, koska sekä sen proteiini- että mRNA-transkriptitasot olivat merkittävästi ylöspäin.
Napsauta linkkiä saadaksesi lisätietoja:https://www.xjcistanche.com/news/nano-milk-protein-mucilage-complexes-characte-55049190.html