
Maidon osteopontiini keskosten suoliston, immuniteetin ja aivojen kehitykseen
Jun 14, 2022
Jos haluat lisätietoja, ota yhteyttädavid.wan@wecistanche.com
Abstrakti
Maidon osteopontiinin (OPN) puutteet äidinmaidonkorvikkeessa voivat osittain selittää kehityserot pikkulasten tai äidinmaidonkorvikkeen välillä. Äänestämme naudanmaidolla täydennetyn maitoruokavalion kokoaOPNparantaa suolistoa, immuniteettia ja aivojen kehitystä ja testasi tätä ennenaikaisessa sikamallissa. Keisarileikkauksella syntyneille keskosille (90 prosentin tiineys) ruokittiin naudan raakamaitoa (CON, n=19) tai samaa ruokavaliota täydennettynä fysiologisesti merkityksellisellä OPN-annoksella (46 mg/(kg:d), n{ {3}}). Kliinisiin tuloksiin, systeemiseen immuniteettiin ja neurokognitiiviseen kehitykseen liittyviä päätepisteitä arvioitiin tutkimuksen aikana, ja suolistokudokset kerättiin päivänä 19. Kasvumalli, varhainen motorinen kehitys ja useimmat systeemiset immuuniparametrit olivat samankaltaisia OPN:n ja neurokognitiivisen kehityksen välillä.CONsikoja. OPN-sioilla oli korkeammat villus-to-crypt -suhteet kuin CON-sioilla ja korkeammat monosyyttien ja lymfosyyttien määrät päivänä 8. Suolen ruoansulatus- ja imeytymistoiminnot ja kognitiivinen suorituskyky (T-sokkelotesti) olivat samanlaisia OPN- ja CON-sikojen välillä. Lopuksi, ravintolisä kanssaOPNnaudan perusmaidon pitoisuudet ylittävät pienet parannukset suoliston rakenteessa ja systeemisessä immuniteetissa ilman, että se vaikutti kognitiiviseen suorituskykyyn. Äidinmaidonkorvikkeen OPN:n vähimmäistasot optimaalisen sopeutumisen varmistamiseksi vastasyntyneen välittömässä jaksossa on vielä määrittämättä.
Avainsanat: osteopontiini; bioaktiivinen maitoproteiini; ennenaikaiset vastasyntyneet; suoliston terveys; systeeminen immuniteetti; aivojen kehitys; kognitio

Napsauta tätä saadaksesi lisätietoja Cistanchesta
1. Esittely
Äidinmaidonkorvikkeen bioaktiivisten proteiinien pitoisuuksien optimointi voi auttaa vähentämään vakiintuneita eroja kehitys- ja sairausresistenssissä äidinmaidonkorvikkeen ja äidinmaidon välillä[1-3]. Osteopontiini (OPN) on hapan proteiini, jolla on korkea glykosylaatio ja fosforylaatio ja jota pidetään tärkeänä stimuloimaan kehitystä vastasyntyneen välittömässä jaksossa ja jota on runsaasti varhaisessa äidinmaidossa[4-6]. OPN-maidon pitoisuudet vaihtelevat huomattavasti lajeittain, ja äidinmaidossa jopa yksilöiden välinen vaihtelu äitien välillä on suuri. Väheneminen imetyksen aikana näyttää johdonmukaiselta havainnosta [5,7]. Monikeskustutkimuksessa OPN-tason mediaani oli 160 mg/l noin 13 viikkoa synnytyksen jälkeen [7]. Ylin 25 prosentin OPN-taso äidinmaidossa oli 230-495 mg/l, mikä on paljon korkeampi kuin naudanmaidon (~18 mg/l) tai äidinmaidonkorvikkeiden (~9 mg/l) keskiarvo. 4]. Tällä hetkellä naudanmaito OPN on kaupallisesti saatavilla, ja sitä voidaan siksi lisätä äidinmaidonkorvikkeeseen saavuttaakseen tasot, jotka ovat samankaltaisia kuin äidinmaidossa.
Koska OPN:ssä on erittäin konservoitunut arginiini-glysiini-aspartaatti (RDG) -integriinia sitova kohta, biologisten vaikutusten voidaan odottaa olevan samanlaisia eri lajeissa [8]. RDG-sekvenssin sisältävä fragmentti on erittäin vastustuskykyinen hajoamiselle johtuen glykosylaatioista lähellä integriinia sitovaa motiivia [9], mikä tukee natiivin maidon OPN:n bioaktiivista potentiaalia suolistossa. In vitro maidon OPN pystyy stimuloimaan suoliston solujen lisääntymistä ja saamaan aikaan antibakteerisia vaikutuksia osana kompleksia laktoferriinin (LF), toisen tärkeän bioaktiivisen maitoproteiinin kanssa [10,11]. Maidon OPN:n hyödylliset vaikutukset suolistossa on osoitettu myös in vivo. Naudan maito OPN on parantanut vastasyntyneiden reesusapinoiden suolen kehitystä, ja OPN-täydennettyjen korvikkeilla ruokittujen eläinten jejunaal-transkriptomi oli samanlainen kuin rintaruokittujen vastineiden [12]. RuokavaliomaitoOPN tehosteetSekä paikallisesti suolistossa että systeemisesti pienen imeytymisen jälkeen imeväisillä suolistosta, on osittain katsottu sen kyvyn stimuloida endogeenisiä OPN-tasoja [5,13,14]. OPN:ää löytyy useimmista kehon kudoksista ja nesteistä, joissa sillä on erilaisia toimintoja, kuten biomineralisaatio ja immuunimodulaatio, sen lisäksi, että se osallistuu solujen lisääntymiseen, migraatioon, adheesioon ja opsonisaatioon [8,10,15,16]. OPN:n tiedetään säätelevän Th1/Th2-tasapainoa, joka vastasyntyneillä on vinossa kohti Th2-polarisaatiota [17]. OPN:llä on sytokiinien kaltaisia ominaisuuksia ja se voi stimuloida Th1-tyypin immuniteettia indusoimalla IL-12:n ilmentymistä ja estämällä IL-10:n, Th2-sytokiinin, tuotantoa makrofageissa [18]. Lisäksi OPN voi tukea aivojen kypsymistä, mikä saattaa edistää kognitiivisten toimintojen paranemista rintaruokinnassa verrattuna äidinmaidonkorvikeella ruokittujen imeväisten [19-21]. Tämän tueksi OPN-ruokitut hiirenpennut osoittivat parempaa oppimiskykyä ja korkeampia myelinisaatioon liittyvien proteiinien ilmentymistasoja, mukaan lukien myeliinin emäksinen proteiini ja myeliiniin liittyvä glykoproteiini, ja OPN tehosti myelinaatiota myös in vitro [14,22,23]. Pitkäaikaisilla sioilla suhteellinen tilavuuden kasvu vaikutti useisiin aivoalueisiin naudanmaidon OPN-ravinnon täydennyksen jälkeen, mutta mitään vaikutuksia kognitioparametreihin ei havaittu [24].
Keskoset (syntyneet<37 weeks="" of="" gestation)="" are="" particularly="" diet-sensitive="" due="" to="" their="" relatively="" immature="" gut,="" immune="" system,="" and="" brain.="" such="" infants="" are="" susceptible="" to="" developing="" both="" short-and="" long-term="" complications="" such="" as="" necrotizing="" enterocolitis="" (nec),="" feeding="" intolerance,="" infections,="" and="" impaired="" neurodevelopment="" [25-28].="" bovine="" milk="" opn="" supplementation="" has="" previously="" been="" shown="" to="" reduce="" nec="" severity="" in="" formula-fed="" preterm="" piglets="" [29],="" and="" other="" milk="" factors="" have="" proven="" to="" support="" brain="" structure="" and="" cognitive="" development,="" particularly="" in="" preterm="" newborns="" [30,31].="" on="" this="" background,="" we="" hypothesized="" that="" preterm="" newborns,="" fed="" a="" standard="" milk="" diet="" with="" relatively="" natural="" bioactivity,="" would="" benefit="" from="" further="" opn="" supplementation.="" following="" an="" initial="" in="" vitro="" demonstration="" of="" opn="" antimicrobial="" activity,="" we="" used="" diet-sensitive="" preterm="" pigs="" [32-34]to="" investigate="" if="" an="" opn-enriched="" bovine="" milk="" diet="" would="" improve="" gut,="" immunity,="" and="" brain="" development="" in="" the="" first="" three="" weeks="" after="" preterm="">
2. Materiaalit ja menetelmät 2.1. In vitro antibakteerinen määritys
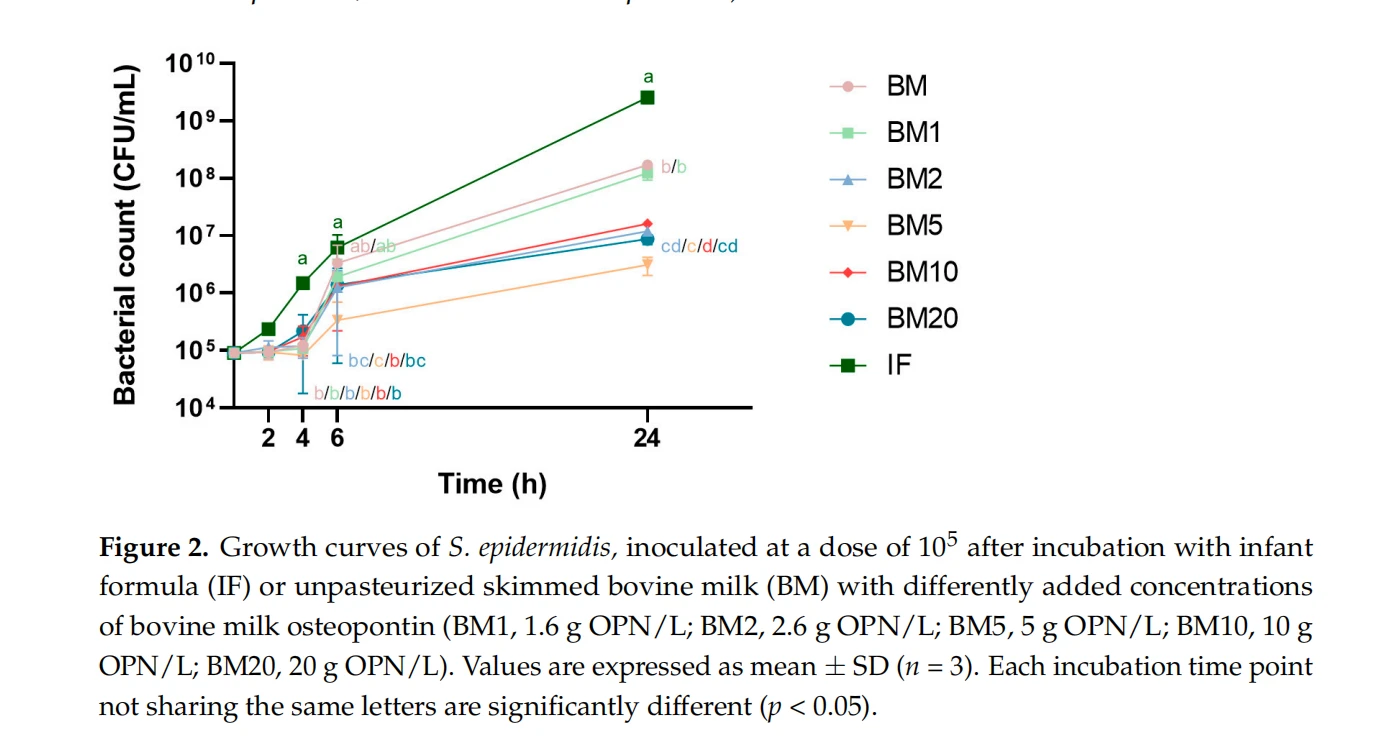
Ensin antibakteerista määritystä [35] käytettiin arvioimaan bioaktiivisuuttaOPNmäärittämällä sen kyky estää Staphylococcus-bakteerin eli yleisen vastasyntyneiden grampositiivisen patogeenin kasvua tai tappaa sen [36]. Sama ehjä pastöroimaton naudanmaito, jota käytettiin enteraalisten ruokien pohjana sikatutkimuksessa, sulatettiin ja sentrifugoitiin peräkkäin 500 × g:ssä ja 3000 × 8,4 asteessa 15 minuutin ajan, imemällä vesikerros joka kerta rasvapitoisuuden poistamiseksi. minimoida maitoproteiinien hävikki [37]. Rasvaton naudanmaidon steriiliystestauksen jälkeenOPNjauhetta (Lacprodan⑧ OPN-10, Arla Foods Ingredients, Viby, Tanska) liuotettiin pitoisuuksina 1,6 (sama kuin 1. päivänä sikatutkimuksessa OPN-maitoon lisätty määrä), 2,8, 5, 10 ja 20 g /L, luomalla 6 testiruokavaliota, mukaan lukien täydentämätön rasvaton naudanmaito, joita säilytettiin 1 ml:n erissä -80 asteessa analyysiin asti. S.epidermidis-bakteerin (WT1457 [38], ystävällisesti tohtori Xiaoyang Wang, Göteborgin yliopisto, Ruotsi) pakastetut mid-log-viljelyvarastot [35] sulatettiin, sentrifugoitiin 3 200 x g:ssä ja suspendoitiin uudelleen steriiliin suolaliuokseen ennen inkubointia 6 testiruokavaliota (kaupallisesti saatavan, ennenaikaisen maidon valmisteen lisäksi, joka sisältyy negatiivisena kontrollina [1]) laskennallisella annoksella 10 astetta ja 106 CFU/ml 2, 4, 6 ja 24 tunnin ajan 37 asteessa. Lopulliset rokotusannokset ja bakteerikasvu testiruokavalioissa ja äidinmaidonkorvikkeessa määritettiin erilaisten inkubaatioaikojen jälkeen [35]. Antibakteerisen määrityksen riippumattomat kolminkertaiset testit suoritettiin.

2.2. Eläimet ja kokeellinen suunnittelu
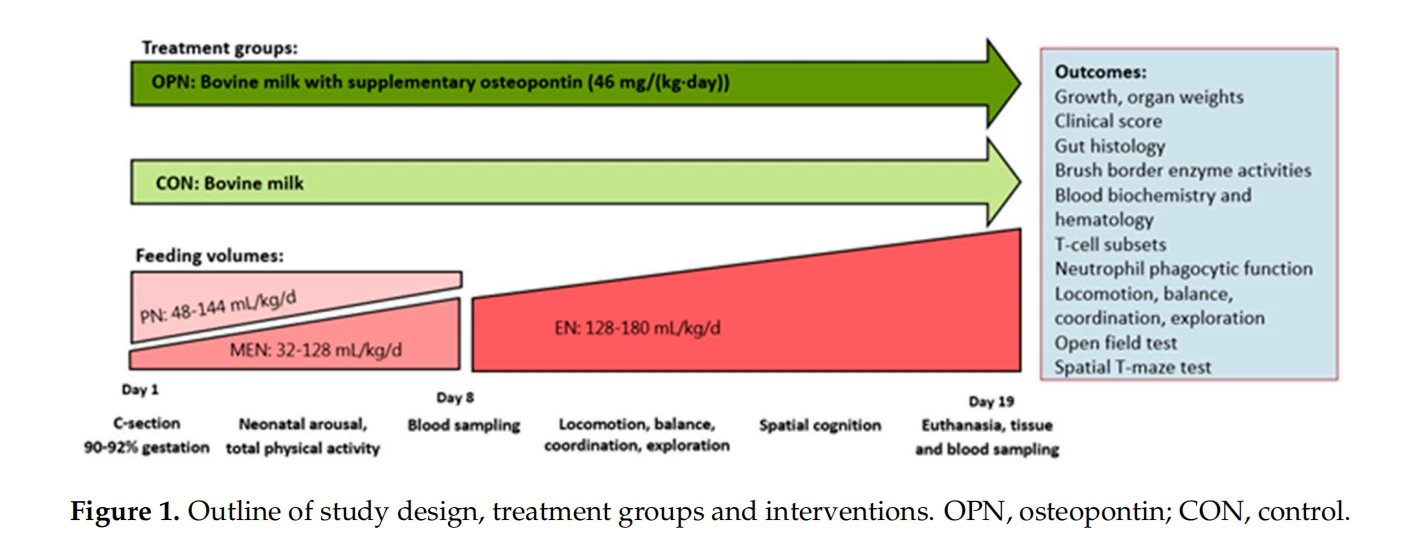
Kaikki eläintoimenpiteet hyväksyttiin ja suoritettiin Tanskan eläinkoetarkastuksen myöntämän lisenssin (lisenssinro 2014-15-0201-00418) alaisena. Neljäkymmentäkahdeksan porsasta (tanskalainen Landracex Yorkshire Duroc) kahdesta kaupallisesti kasvatetusta emakosta poistettiin ennenaikaisesti keisarileikkauksella noin 90 prosentin tiineysasteella (täysi aika: 117 ± 2 päivää). Onnistuneen elvyttämisen jälkeen ja nukutettuna vielä äidin anestesialääkkeistä, napavaltimon pysyvä katetri parenteraalisen ravitsemuksen helpottamiseksi (PN) ja orogastrinen syöttöletku enteraalisen ravitsemuksen (EN) helpottamiseksi suoritettiin aiemmin kuvatulla tavalla 32]. Kuusiporsasta lopetettiin välittömästi syntymän jälkeen epäonnistuneen elvytystoimen vuoksi, ja siksi heidät suljettiin pois tutkimuksesta. Yhteensä neljäkymmentäkaksi porsasta ositettiin sukupuolen ja syntymäpainon mukaan ja jaettiin toiseen kahdesta ryhmästä: yksi ryhmä sai naudan raakamaitoa täydennettynä OPN:lla (OPN, n=21) ja kontrolliryhmä, joka sai täydentämätöntä raakaa naudanmaitoa. maito(CON, n=21)(Kuva 1). Äidin plasmaa infusoitiin 3 boluksessa (yhteensä 25 ml/kg) napakatetrin kautta ensimmäisen 24 tunnin aikana passiivisen immunisaation varmistamiseksi. Sikoja kasvatettiin yksittäin koko 19 päivän tutkimusjakson ajan. Päivistä 1-5 niitä kasvatettiin ilmastoiduissa lämmitetyissä inkubaattoreissa (sekä hapetus ensimmäisten 24 tunnin aikana), ja päivinä 5 ja 11 ne siirrettiin suurempiin häkkeihin. Kaikki kliiniset tutkijat sokaisivat ruokavaliohoidoista koko koejakson ajan.
2.3. Ravinto ja ruokinta
Kaikkien sikojen enteraalinen ruokavalio perustui pastöroimattomaan, koskemattomaan naudanmaitoon, joka kerättiin kahdessa erässä paikalliselta jerseyläiseltä lehmätilalta ja säilytettiin -20 asteessa. Naudanmaitoon lisättiin kivennäisaineita ja vitamiineja (15 g/l Pediatric Seravit, Nutricia, Utrecht, Alankomaat) ja elektrolyyteillä (6 g/l Revolyte Nutrition, Gunnar Kjems ApS, Kööpenhamina, Tanska). Tämä maitopohja toimi täydellisenä enteraalisena ruokavaliona CON-ryhmän porsaille. OPN-ryhmän sioilla naudanmaitopohjaa täydennettiin edelleen naudanmaidolla OPN (Lacprodan⑧ OPN-10) keskimääräisellä lisäannoksella.OPNkonsentraatio 319 mg/l (IQR 272-445), jotta päivittäinen kiinteä lisäannos OPN on 46 mg/(kg·vrk). Pitoisuus on äidinmaidon OPN-alueella [4]. OPN:n pitoisuus kerätyssä naudanmaidossa oli 91 mg/l mitattuna nestekromatografia-tandem-massaspektrometrialla (LC-MS/MS, Alphalyse A/S, Odense, Tanska). OPN:n lisäannos valittiin äidinmaidon ylärajan sisäpuolelle, jotta varmistetaan kohtuullinen ero naudanmaidon kontrolliruokavalioon nähden. Enteraaliset ruokavaliot valmistettiin päivittäin ja niitä säilytettiin 4 asteessa käyttöön asti (<24 h).="" pigs="" received="" gradually="" increasing="" volumes="" of="" en="" from="" 32="" ml/(kg.="" day)="" on="" day="" 1="" to="" 180ml/(kg:="" day)on="" day="" 15="" and="" until="" euthanasia.="" the="" enteral="" diets="" were="" given="" as="" boluses.="" during="" the="" daytime,="" the="" boluses="" were="" given="" every="" second="" hour,="" and="" during="" the="" night="" every="" third="" hour="" until="" day="" 9.="" thereafter,="" the="" feeding="" frequency="" was="" reduced="" to="" every="" third="" hour,="" day="" and="" night.="" the="" en="" was="" given="" through="" the="" orogastric="" feeding="" tube="" until="" day="" 5="" when="" pigs="" were="" taught="" to="" drink="" from="" troughs.="" the="" pn="" was="" given="" as="" a="" continuous="" infusion="" in="" decreasing="" amounts="" from="" days="" 1-8="" (144-148="" ml/(kg.="" day))to="" counterbalance="" the="" small="" enteral="" volumes="" the="" piglets="" can="" cope="" with.="" the="" pn="" solution="" was="" a="" commercially="" available="" human="" parenteral="" nutrition="" product="" (kabiven,="" fresenius="" kabi,="" uppsala,="" sweden)="" adjusted="" to="" the="" requirements="" of="" piglets="" as="" previously="" described="" [32].="" after="" removal="" of="" the="" orogastric="" feeding="" tube="" on="" day="" 11="" and="" onwards,="" all="" pigs="" had="" free="" access="" to="">
2.4. Kliininen arviointi ja kudosten kerääminen
Koko tutkimusjakson ajan sikoja seurattiin tarkasti (vähintään 3 tunnin välein) ja kliiniset pisteet määritettiin kahdesti päivässä, kuten aiemmin on kuvattu [33]. Kliinisistä indikaatioista aloitettiin asiaankuuluvat hoidot, esim. lihaksensisäisten analgeettien antaminen (meloksikaami: Metacam, 5 mg/ml Boehringer Ingelheim, Ingelheim am Rhein, Saksa tai butorfanoli: Torbugesic Vet, 10 mg/ml, Zoetis, Parsippany, NJ, USA). Jos hoitovastetta ei saatu, siat lopetettiin. Ruumiinpainot mitattiin joka päivä, ja keskimääräinen painonnousu ilmaistuna g/(kg.d) laskettiin kaavan mukaan: (paino eutanasiassa - paino syntymässä)/(keskimääräinen ruumiinpaino × elinikä). Kaksi kertaa päivässä ulosteet pisteytettiin seuraavasti: 1 (kiinteät ulosteet), 2 (pehmeät/tahnamaiset ulosteet), 3 (kermaiset ulosteet) ja 4 (ripuli). Suun kautta otettavaa elektrolyyttiliuosta (Revolyte Nutrition) annettiin ruokien välillä ripulitapauksissa kuivumisen välttämiseksi. Ennalta ehkäisevät oraaliset antibiootit (metronidatsoli: Flagyl, 40 mg/ml, Sanofi-Aventis, Pariisi, Ranska; amoksisilliini, 500 mg, klavulaanihapon kanssa, 125 mg: Bioclavid, Sandoz GmbH, Kööpenhamina, Tanska; gentamysiini: Gentocin Vet, 4 5 mg/ml. , Scanvet, Fredensborg, Tanska) annettiin kahdesti päivässä päivästä 8-10 napavaltimon katetrin poistamisen jälkeen. Sama oraalisten antibioottien yhdistelmä annettiin terapeuttisesti indikaation mukaan. Päivänä 19, 60 minuuttia ennen eutanasiaa, sioille annettiin viimeinen standardoitu bolus vastaavasta ruokavaliostaan. Siat nukutettiin lihaksensisäisellä injektiolla tsolatsepaami/tiletamiinia (tsoletil 50,25 mg/ml tsolatsepaamia ja 25 mg/ml tiletamiinia, Virbac, Carros, Ranska), ketamiinia (Ketaminol, 50 mg/ml, MSD Animal Health, Kenilworth, NJ) , USA) ja butorfanoli (Torbugesic Vet), ja sen jälkeen ne lopetettiin natriumpentobarbitaalilla (Euthanimal, 400 mg/ml, Scanvet) sydämensisäisellä injektiolla. Välittömästi eutanasian jälkeen sisäelimet leikattiin ja punnittiin, sekä kokonaiset elimet että tietyt elinalueet (esim. täysi/tyhjä vatsa, ohutsuoli, paksusuoli, koko aivot, aivoalueet, maksa, perna, munuaiset, keuhkot ja sydän). Aivojen vesiosuus arvioitiin punnitsemalla vasen aivopuolisko ennen ja jälkeen dehydratoinnin 14 päivän ajan 50 asteessa. Jokainen viidestä ruoansulatuskanavan alueesta (vatsa, proksimaalinen ohutsuoli (Prox), ohutsuolen keskimmäinen (Mid), distaalinen ohutsuole (Dist) ja paksusuoli) arvioitiin makroskooppisesti ja niille annettiin NEC-pisteet [39]. Kudosnäytteet jokaiselta maha-suolikanavalta kerättiin ja pakastettiin nestetypessä tai kiinnitettiin 4-prosenttiseen formaldehydiin ja säilytettiin -80 asteessa lisäanalyyseihin asti. Tutkimuksen suunnittelu ja tulokset on esitetty kuvassa 1.

2.5. Suolen limakalvon rakenne ja siveltimen raja-entsyymitoiminta
Limakalvon rakenne ohutsuolessa arvioitiin mittaamalla paraformaldehydiin kiinnitettyjen ja hematoksyliinilla ja eosiinilla värjättyjen Prox-, Mid- ja Dist-kudosten histologisten viipaleiden villun korkeus ja kryptan syvyys, kuten aiemmin on kuvattu [40]. Prox-, Mid- ja Dist-leikkeiden replikaattien Ki-67:n immunohistokemiallista värjäystä käytettiin enterosyyttien lisääntymisen arvioimiseen ohutsuolen limakalvossa, kuten aiemmin on kuvattu [41]. Neljä kuvaa kustakin kopiosta saatiin systemaattisella satunnaisella tavalla käyttämällä valomikroskooppia (Ortho-plane, Leitz, Saksa), joka oli kiinnitetty kameraan ja 10-kertaiseen objektiiviin. Kuva-analyysi suoritettiin käyttämällä Fiji: Image]-kuvaa (NIH Image, Bethesda, Maryland), ja Ki-67-positiivisesti värjäytyneiden ytimien kokonaispinta-ala laskettiin murto-osana ytimien kokonaispinta-alasta. Kuuden siveltimen reunaentsyymin (maltaasi, sakkaroosi, laktaasi, aminopeptidaasi N (ABN), aminopeptidaasi A (APA) ja dipeptidyylipeptidaasi IV (DPPIV)) aktiivisuus määritettiin kudoshomogenaateissa spektrofotometrialla [42].
2.6.Veren biokemia, hematologia ja systeeminen immuniteetti
Verinäytteet biokemiallisia ja hematologisia parametreja varten analysoitiin päivänä 1 napanuorasta C-leikkauksen aikana, päivänä 8 avoimesta napavaltimon katetrista tai vaihtoehtoisesti kaulalaskimosta ja päivänä 19 sydänpunktiosta eutanasian aikana. Plasma biokemiaa varten, joka oli saatu heparinisoidulla veren vacutainerilla (BDDiagnostics, Oxford, UK), jota seurasi sentrifugointi (2500 x g, 4 astetta 10 minuutin ajan), analysoitiin käyttämällä ADVIA 1800 Chemistry System -järjestelmää (Siemens Healthcare GmbH, Erlangen, Saksa). Täysi veri hematologiaa ja immuunisolulukuja varten, jotka oli saatu EDTA-päällysteisellä verenvacutainerilla (BD Diagnostics), analysoitiin käyttämällä ADVIA 2120i Hematology System -järjestelmää (Siemens Healthcare GmbH).
Systeemisiä immuniteettiin liittyviä määrityksiä veren T-solujen alaryhmien, neutrofiilien fagosytoosin toiminnan ja immuunikompetenssien tutkimiseksi ex vivo veren Toll-like reseptorin (TLR) stimulaatiolla suoritettiin täydellisille verinäytteille, jotka oli kerätty heparinisoituun verivacutaineriin (BD Diagnostics) kahdella päivää; Päivä 8 napavaltimon katetrista tai vaihtoehtoisesti kaulalaskimosta ja päivä 19 kaulalaskimosta. Veren T-solujen alajoukon karakterisointi mitattiin aiemmin kuvatulla tavalla [43]. Lyhyesti sanottuna erytrosyytit lyysattiin käyttämällä 1 X BD FACS Lysing -liuosta (BD Biosciences, Franklin Lakes, NJ, USA) ja leukosyyttejä inkuboitiin kiinnitys/permeabilisaatiopuskurin kanssa (Invitrogen, Carlsbad, California) 30 minuuttia 4 asteessa pimeässä. Permeabilisaatiopuskurilla (Invitrogen) pesun jälkeen solut estettiin sian seerumilla (ThermoFisher Scientific, Waltham, MA, USA) 15 minuutin ajan 4 astetta pimeässä ja värjättiin sen jälkeen neljällä fluoresoivasti leimatulla monoklonaalisella vasta-aineella; PE-Cy7-konjugoitu hiiren anti-sian CD3-vasta-aine (klooni BB23-8E6-8C8, BD Biosciences), FITC-konjugoitu hiiren anti-sian CD4-vasta-aine (klooni MIL17, Bio- Rad Laboratories, Hercules, California), PE-konjugoitu hiiren anti-sian CD8-vasta-aine (klooni MIL12, Bio-Rad Laboratories) ja APC-konjugoitu rotan anti-hiiri-FOXP3-vasta-aine (klooni JFK-16s, ThermoFisher Scientific). Näytteet analysoitiin käyttämällä BD Accuri C6 -virtaussytometriä (BDBIosciences) ja T-solupopulaatioita (CD3 plus lymfosyytit), sytotoksisia T-soluja (CD3 plus CD4-CD8 plus lymfosyytit), auttaja-T-soluja ( CD3 plus CD4 plus CD8-lymfosyytit) ja säätelevät T-solut (CD3 plus CD4 plus FoxP3 plus lymfosyytit) tunnistettiin. Veren neutrofiilien fagosyyttinen toiminta analysoitiin virtaussytometrialla käyttäen pHrodo Red Escherichia colia (560/585) nm) Biohiukkasten fagosytoosipakkaus virtaussytometriaa varten (ThermoFisher Scientific)34]. Fagosyyttinopeus osoitti fagosytoosia aiheuttavien neutrofiilien prosenttiosuudella neutrofiilipopulaatiossa (pHrodo plus ) ja neutrofiilien fagosyyttikykyä osoitti mediaani fluoresenssiintensiteetti (MFI). Systeemisen tulehdusvasteen arvioimiseksi ex vivo Gram- negatiivinen bakteerialtistus, 294 µl täyttä verta inkuboitiin TLR4-agonistin (lipopolysakkaridi (LPS), E. coli O127:B8, Sigma Aldrich, St. Louis, MI, USA) kanssa 5 tunnin ajan 37 asteessa, 5 prosentin CO. Stimuloitua ja stimuloimatonta verta sentrifugoitiin sitten 2000 × g:llä, 4 astetta 10 minuuttia, ja plasmasupernatantit analysoitiin tuumorinekroositekijän (TNF) ja interleukiinin (IL)-10 suhteen ELISA:lla (Porcine Specific Duoset Kits, R&D). Systems, Abingdon, UK) valmistajan ohjeiden mukaisesti. Plasmanäytteet laimennettiin 2-2,5 kertaa ennen analyysiä. Vain näytteet, joiden sytokiinien absorbanssitasot olivat standardialueella, otettiin mukaan keskimääräisten sytokiinitasojen ja -suhteiden laskemiseen. Kuitenkin näytteille, joiden sytokiinien absorbanssitasot olivat alimman standardin alapuolella, mutta korkeammat kuin nollanäytteessä, annettiin mielivaltainen arvo, joka oli puolet levyn alimmasta havaitusta tasosta, ja ne sisällytettiin tilastolliseen analyysiin.

2.7. Varhainen motorinen kehitys, käyttäytyminen ja kognitio
Ensimmäisen seisomisen ja ensimmäisen kävelemisen aika syntymän jälkeen mitattiin arvioina perusmotoriikan hankkimisesta. Jokaisen kotihäkin yläpuolelle asennetut liikeherkät infrapunakamerat tallensivat jatkuvasti sian motorista aktiivisuutta päivästä 1 alkaen klo 21:00 iltapäivällä, jolloin siat olivat täysin toipuneet emon anestesiasta päivään 11 asti[33]. Keskimääräinen aktiivisen ajan osuus tunnin aikana laskettiin 12-tuntivälien tallennuksista päiväsaikaan (9:00 aamulla 21:00) ja yöaikaan (alkaen 9:{{12). }} iltapäivällä klo 9:00). Kunkin sian tutkimuskäyttäytyminen arvioitiin päivänä 9 avoimella kenttäareenalla (1,2 m × 1,2 m) videokameralla lintuperspektiivistä {{ 20}}min tallennusaika sioilla satunnaisessa järjestyksessä. Kaksi sokeutunutta tarkkailijaa antoi sioille reaaliaikaisen kokonaispistemäärän neljän objektiivisen parametrin perusteella: lattiakosketus, seinäkosketus, pakoyritykset ja joukko askeleita. Hankitut videot analysoitiin myöhemmin EthoVision XT10:llä (Noldus Information Technology, Wageningen, Alankomaat). Tulokset olivat kullekin porsaalle siirretty kokonaismatka ja nopeus laskettu. Riittävän visuaalisen kehityksen ja totuttelujakson jälkeen kunkin porsaan avaruudellinen kognitio arvioitiin satunnaistetussa järjestyksessä päivien 12-18 aikana käyttämällä standardoitua spatiaalista T-sokkelokognitiotestiä [44]. Hippokampuksesta riippuvaista oppimista ja muistia testattiin 1-2 hankinnan aikana päivässä, joista jokainen koostui 10 kokeesta. Possuille sovellettiin ylimääräisiä sokkeloisia visuaalisia vihjeitä navigoimaan kiinteän maitopalkkion löytämiseksi. Sikojen vuorottelevia aloitusasemia käytettiin egokeskeisten vastemekanismien välttämiseksi ja maitoa laitettiin molempiin palkitsemishaaroihin. Hajusignaalien peittämiseksi maitoa oli kuitenkin saatavilla vain toisesta käsivarresta. Oikeiden valintojen määrä hankintaa kohti kirjattiin vakiovaiheen (Hankinnat 1-6, Päivät 12-17) ja käänteisvaiheen (Hankinnat 7-9, päivää 17-18) aikana. Kääntövaiheessa maitopalkkio vaihdettiin vastakkaiseen käsivarteen. Oppimiskriteeriksi määriteltiin vähintään 80 prosenttia oikeita valintoja (8 oikeaa valintaa 10 kokeesta) [30].

2.8. Tilastollinen analyysi
Tilasto-ohjelmistoa R (versio 3.6.0) käytettiin kaikkiin tilastollisiin analyyseihin. Antibakteerista määritystä varten S.:n kasvun erot kuuden testiruokavalion ja äidinmaidonkorvikkeen välillä analysoitiin 2-24 h inkubaatiotunnin aikana käyttämällä lineaarista sekavaikutusmallia (Ime-funktio) rokotusannoksen, -ajan ja testiruokavalion kanssa. /formula kiinteinä vaikutuksina (mukaan lukien kahden viimeisen vuorovaikutus) ja koejakso satunnaisena vaikutuksena, jota seuraa parivertailu kullakin aikapisteellä (ls tarkoittaa pakettia). Jatkuvat toistuvat mittaukset sikatutkimuksesta (eli ruumiinpaino, kotihäkin aktiivisuus, oikeat valinnat spatiaalisessa T-sokkelokognitiotestissä ja ohutsuolen parametrit mitattuna useilta alueilta) analysoitiin käyttämällä lineaarista sekavaikutusmallia (minun toiminto). mukaan lukien sopiva korrelaatiorakenne ja sika satunnaisena vaikutuksena. Paketti helpotti myöhempiä vertailuja kussakin ohutsuolen alueella. Coxin suhteellista vaaramallia (funktiota) käytettiin jatkuvalle ajalle tapahtumaan (eli motoristen perustaitojen hankkimiseen ja ensimmäiseen ripuliin). Kaikki muut jatkuvat tiedot analysoitiin käyttämällä moninkertaista lineaarista regressiomallia (lm-funktio). Holm-korjausta sovellettiin kaikkiin veren biokemiallisiin tietoihin useiden vertailutestien korjaamiseksi ja perhekohtaisen virhesuhteen kontrolloimiseksi. Erilliset ajasta tapahtumaan liittyvät tiedot (eli T-sokkelon oppimiskriteerin saavuttaneiden sikojen prosenttiosuus) analysoitiin käyttämällä yleistettyä moninkertaista lineaarista regressiomallia (funktiota), jossa oli binomiaalinen vaste ja täydentävä log-log-linkki. Sukupuoli, pentue ja syntymäpaino tunnistettiin biologisesti merkittäviksi mahdollisiksi hämmentäjiksi ennen tutkimusta ja sisällytettiin siten kiinteiksi vaikutuksiksi kaikkiin yllämainituihin malleihin. Lisäksi kaikkien veren biokemiallisten ja hematologisten parametrien osalta lähtötasot, jotka mitattiin päivänä 1 ennen ryhmän satunnaistamista, sisällytettiin kiinteinä vaikutuksina vastaaviin useisiin lineaarisiin regressiomalleihin. Lineaaristen regressiomallien mallin validointi suoritettiin graafisilla näytöillä jäännösten ja sovitettujen arvojen normaaliudesta ja homoskedastisuudesta, ja tarvittaessa suoritettiin datamuunnoksia (log tai sqrt) näiden oletusten täyttämiseksi. Muuttujille, jotka eivät pystyneet vastaamaan normaalijakaumaa, käytettiin ei-parametrista Mann-Whitney-testiä. Kategorisilla vastemuuttujilla varustetut regressiomallit validoitiin tutkimalla kumuloidut jäännökset käyttämällä (paketin) sopivuustestiä. Ellei toisin mainita, raakatiedot esitetään keskiarvoina ± SD ja p-arvoina<0.05 are="" considered="" statistically="">

3. Tulokset
3.1. In vitro antibakteerinen määritys
Eri pitoisuuksilla OPN:lla täydennetyn rasvattoman naudanmaidon vaikutuksia S.:n kasvuun ja elinkykyyn arvioitiin ja verrattiin äidinmaidonkorvikkeeseen. Äidinmaidonkorvikkeen kanssa 4, 6 ja 24 tunnin inkuboinnin jälkeen S.-pitoisuus nousi noin 10, 50 ja 1 × 10 plus -kertaisesti molemmilla rokotusannoksilla (10) ja 10 asteen FU:lla. ). Kuuden testiruokavalion ja kaavan välillä ei ollut eroja ennen 4 tunnin inkubaatiota 105 CFU:n rokotusannoksella (kuvio 2). Naudanmaitoon perustuvilla koeruokavalioilla oli kuitenkin ilmeinen bakterisidinen vaikutus äidinmaidonkorvikkeeseen verrattuna, koska S.-pitoisuus pysyi näissä staattisena 1-4 h inkuboinnin aikana. 4 tunnin inkubaation kohdalla saman rokotusannoksen jälkeen bakteerimäärät olivat alhaisemmat kaikissa kuudessa testiruokavaliossa verrattuna kaavaan (noin 10 kertaa, p < 0,01).="" opn-lisällä="" oli="" annosriippuvaisia="" pitkäaikaisia="" bakteriostaattisia="" vaikutuksia="" s.:tä="" vastaan,="" koska="" bakteerimäärät="" 6="" tunnin="" inkubaation="" jälkeen="" olivat="" merkittävästi="" alhaisemmat="" testiruokavalioissa,="" jotka="" sisälsivät="" 4="" suurinta="" opn-annosta=""><0.05,10>rokotusannos). Vain täydentämätön rasvaton naudanmaito menetti hetkellisesti kykynsä estää bakteerien kasvua, kun sitä inkuboitiin 6 tuntia (105 CFU:n rokotusannos). 24 tunnin inkuboinnin jälkeen bakteerimäärät olivat alhaisemmat kaikissa kuudessa testiruokavaliossa verrattuna kaavaan (p<001, 105="" cfu="" inoculation="" dose).="" all="" 6="" test="" diets="" exerted="" bacterial="" inhibitory="" effects="" (initially="" bactericidal)="" against="" s.,="" inoculated="" at="" 10°cfu,="" at="" all="" tested="" time=""><2 h="" of="" incubation=""><0.07,>2 h inkubointia p<>
3.2. Kliiniset ja kasvutulokset
Seitsemän sikaa (5/21 OPN verrattuna 2/21 CON, p=0.4) 42 porsaasta lopetettiin/kuoli kokeen alussa kypsymättömyyteen liittyvien/iatrogeenisten komplikaatioiden seurauksena (
3.3. Suolen rakenne ja toiminta
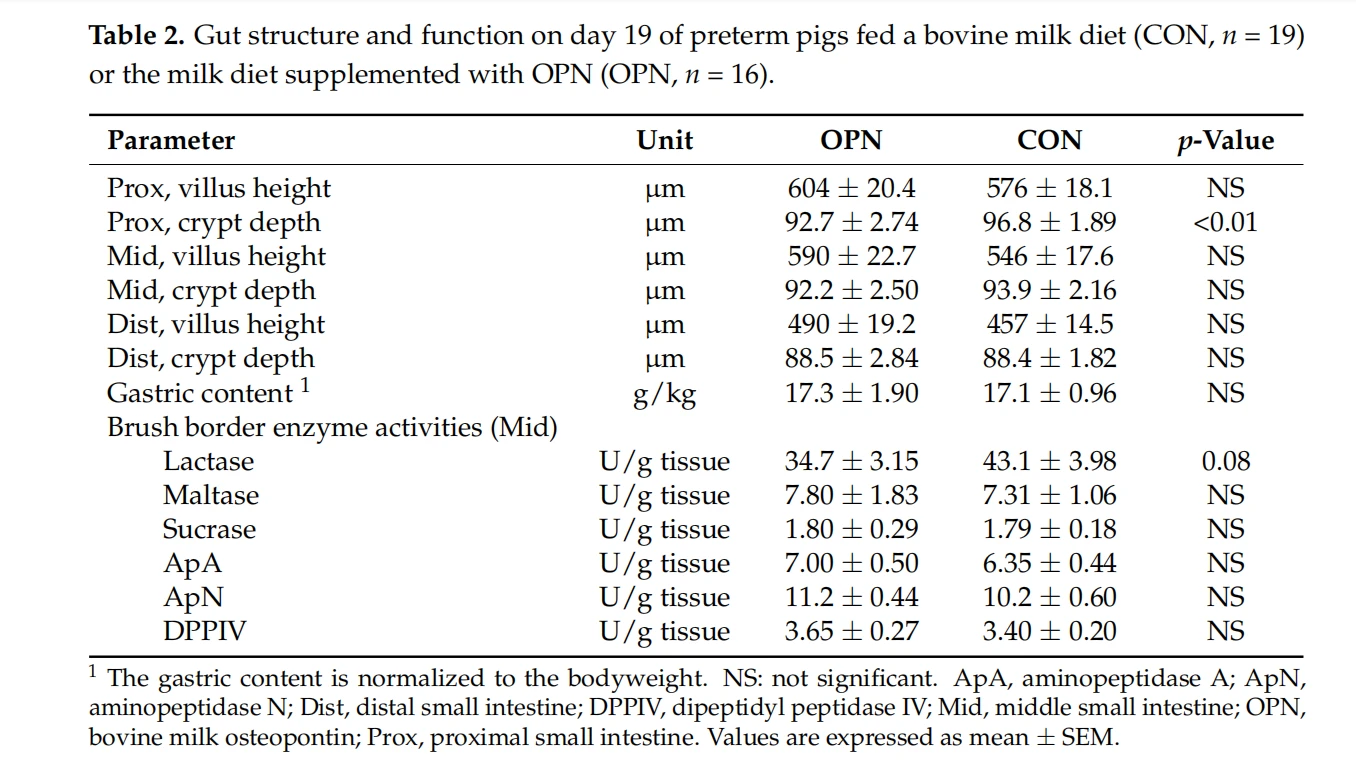
Villuksen korkeus ja kryptan syvyys, arvioituna ohutsuolen proksimaalisissa, keski- ja distaalisissa osissa, olivat samanlaiset molemmissa ryhmissä (taulukko 2). Verrattuna CON:iin, yleisesti korkeampi villus-to-crypt -suhde kolmella ohutsuolen alueella mitattiin OPN(p<0.05, figure="" 4a).="" similar="" amounts="" of="" proliferative="" enterocytes="" were="" observed="" between="" the="" two="" groups,="" indicated="" by="" the="" same="" relative="" area="" of="" ki-67="" positive="" stained="" nuclei="" in="" the="" three="" small="" intestinal="" regions="" (figure="" 4b,="" c).="" further,="" the="" gastric="" emptying="" ability="" indicated="" by="" the="" gastric="" content="" weights="" at="" euthanasia="" as="" well="" as="" the="" activity="" of="" lactase,="" maltase,="" sucrase,="" apa,="" abn,="" and="" dppiv="" measured="" in="" the="" middle="" part="" of="" the="" small="" intestine="" were="" comparable="" between="" the="" groups="" (table="">
3.4. Veren biokemia, hematologia ja systeeminen immuniteetti
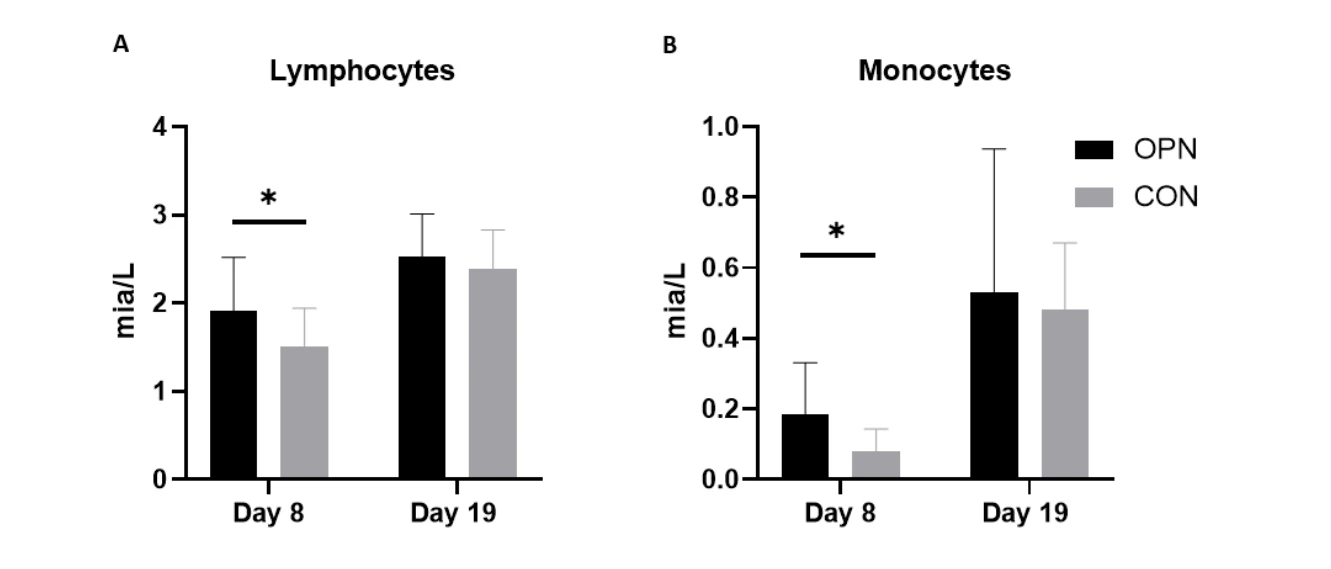
Napanuoraverinäytteet paljastivat korkeamman leukosyyttien ja basofiilien kokonaismäärän ensimmäisenä päivänä (s<0.05)of pigs="" later="" assigned="" the="" opngroup="" relative="" to="" pigs="" assigned="" the="" con="" group.="" no="" other="" immune="" cell="" counts,="" blood="" biochemistry,="" or="" hematology="" variables="" differed="" between="" the="" two="" groups="" prior="" to="" receiving="" their="" specific="" dietary="" interventions(data="" not="" shown).="" blood="" biochemistry="" variables="" measured="" on="" days="" 8="" and="" 19="" did="" not="" differ="" between="" groups(table="" s1,="" supplementary="" materials),="" and="" accompanied="" hematology="" parameters="" and="" immune="" cell="" counts="" are="" presented="" in="" table="" 3.="" compared="" with="" con="" pigs,="" opn="" pigs="" had="" a="" higher="" lymphocyte="" and="" monocyte="" count="" on="" day=""><0.05, figure="" 5a,="" b).="" the="" lymphocyte="" and="" monocyte="" count="" increased="" from="" day="" 8="" to="" day="" 19,="" with="" no="" final="" differences="" between="" the="" groups(figure="" 5a,="" b).="" the="" remaining="" immune="" cell="" counts="" and="" nonimmune-related="" hematological="" parameters="" were="" similar="" between="" opn="" and="" con="" pigs="" (table="" 3).="" innate="" and="" adaptive="" immune="" parameters="" were="" evaluated="" on="" days8="" and="" 19.="" on="" day="" 8,="" the="" blood="" neutrophil="" phagocytic="" rate="" and="" capacity="" were="" similar="" between="" opn="" and="" con="" (table="" 3).="" conversely,="" on="" day="" 19="" they="" had="" a="" higher="" frequency="" of="" neutrophils="" exerting="" phagocytosis="" compared="" with=""><0.05). the="" phagocytic="" capacity="" was="" though="" not="" different="" between="" groups="" (figure="" 5c,="" d).="" the="" t-cell="" subset="" characterization="" on="" days="" 8="" and="" 19="" did="" not="" reveal="" any="" differences="" between="" t="" helper="" cells,="" cytotoxic="" t="" cells,="" and="" regulatory="" t="" cells="" in="" the="" two="" groups="" (table="" 3).="" a="" representative="" facs="" gating="" is="" shown="" in="" figure="" s1,="" supplementary="" materials.="" the="" tlr4-mediated="" il10="" and="" tnf-α="" cytokine="" production="" of="" full="" blood="" from="" days="" 8="" and="" 19="" was="" evaluated.="" tnf-α="" and="" il10="" were="" detected="" at="" similar="" levels="" between="" opn="" and="" con="" in="" unstimulated="" plasma="" obtained="" on="" day="" 8="" and="" there="" were="" no="" group="" differences="" in="" the="" response="" to="" lps="" stimulation="" indicated="" by="" a="" similar="" tnf-α/il10="" ratio(table="" s2,="" supplementary="" materials).="" tnf-α="" was="" not="" detectable="" in="" unstimulated="" plasma="" obtained="" on="" day="" 19="" from="" either="" group.="" however,="" both="" groups="" responded="" equally="" to="" lps="" stimulation,="" indicated="" by="" similar="" tnf-α="" and="" il-10="" plasma="" levels="" (table="" s2,="" supplementary="">
3.5. Aivojen rakenteellinen ja toiminnallinen tulos
Aivojen rakenteelliset tulokset, mukaan lukien aivojen kokonaispainon absoluuttiset ja suhteelliset arvot, alueelliset aivojen painot ja aivojen vesipitoisuus, olivat samanlaisia OPN- ja CON-ryhmien välillä (taulukko 4). Varhaisessa motorisessa kehityksessä ei havaittu eroja, sillä ensimmäisen seisomisen aika, ensimmäinen kävely ja ensimmäinen vapaaehtoinen täysimaitoboluksen nauttiminen sekä aktiivisen ajan osuus kotihäkeissä mitattiin Days {:n liikeherkillä kameroilla. {3}}, olivat samanlaisia OPN:n ja CON:n välillä (kuva 6A-D). Sikojen tutkimuskäyttäytyminen, joka arvioitiin avoimella kentällä 9. päivänä, oli vertailukelpoinen kahden ryhmän välillä, koska kokonaispisteet, kokonaismatka ja nopeus olivat samanlaiset (taulukko 4). Lisäksi samanlainen kognitiivinen suorituskyky havaittiin standardin ja käänteisen vaiheen aikana spatiaalisen T-sokkelon kognitiotestissä, joka suoritettiin 9:n hankinnan aikana päivästä 12-18 päivään (kuva 7A, B). Oikeiden valintojen keskimääräinen osuus ajan myötä kasvoi molemmissa ryhmissä molemmissa vaiheissa (Kuva 7A). Vakiovaiheessa sekä OPN että CON saavuttivat hankinnassa 5 ennalta määritetyn oppimiskriteerin (80 prosenttia oikeita valintoja, kuva 7A). Kaikki siat saavuttivat oppimiskriteerin, eikä oppimiskriteerin saavuttamiseen kuluvassa ajassa ollut eroa (kuva 7B).

4. Keskustelu
OPN:n monikäyttöiset vaikutukset, erityisesti sen proliferatiivisen, immuunijärjestelmän säätelyn ja antibakteerisen aktiivisuuden, mutta mahdollisesti myös aivojen kehityksen tukemisen, voivat auttaa parantamaan herkkien vastasyntyneiden ja imeväisten terveyttä ja elinten kehitystä. Korkeat OPN-tasot äidinmaidossa ja vastaavat imeväisten plasman OPN-pitoisuudet edistävät riittävää OPN:n saantia vastasyntyneen välittömässä jaksossa, kun imeväisille ruokitaan äidinmaitoa [5]. Päinvastoin, naudanmaidon ja äidinmaidonkorvikkeiden pienempi OPN-pitoisuus 4 tarjoaa mahdollisuuden lisätä maidonkorvikkeiden OPN-pitoisuutta, ja OPN-lisäys voi auttaa vähentämään maidon ja äidinmaidon välisiä kehityseroja. -ruokitut pikkulapset [2,3]. Tässä tutkimuksessa osoitimme, että OPN:n lisääminen naudanmaidon ruokavalioon, jossa oli OPN-peruspitoisuutta, oli hyvin siedetty, mutta suolen rakenteessa ja systeemisessä immuniteetissa havaittiin vain vähäisiä parannuksia, eikä muita vaikutuksia aivojen rakenteeseen ja toimintaan havaittu. Naudanmaitopohja valittiin varmistamaan relevantti bioaktiivinen perusruokavalio verrattuna maitovalmisteeseen, jolla on alhaisemman OPN-pitoisuuden lisäksi myös vähentynyt bioaktiivisuus. Maidon OPN tunnustetaan tärkeäksi biologisesti aktiiviseksi heraproteiiniksi, mikä johtuu pääasiassa sen kyvystä moduloida immuniteettia ja stimuloida solujen lisääntymistä [18,45]. OPN:n kyky muodostaa komplekseja maidosta löytyvän positiivisesti varautuneen laktoferriinin kanssa voi lisätä toiminnallisia ominaisuuksia, jotka edistävät puolustusta taudinaiheuttajia vastaan pikkulasten suolistossa [10]. OPN-laktoferriinikompleksia löytyy ihmisen ja naudan maidosta, mutta se voi muodostua myös yksittäisistä proteiineista [10]. Dokumentoidaksemme OPN:n bioaktiivista potentiaalia naudanmaitopohjaisessa ruokavaliossa testasimme alun perin steriiliin rasvattomaan Jersey-maitoon eri pitoisuuksina lisätyn naudanmaidon OPN:n antibakteerista kykyä in vitro. Tuloksemme osoittavat, että OPN-täydennetty maitoruokavalio vaikuttaa sekä lyhyt- että pitkäkestoiseen antibakteeriseen kykyyn annosriippuvaisella tavalla estämällä S.epidermidiksen, yleisen vastasyntyneiden patogeenin, joka aiheuttaa myöhään alkavan sepsiksen suolen translokaation jälkeen, kasvua [46,47 ]. Tämä tarjoaa mahdollisuuden stimuloida suoliston kehitystä OPN-lisäyksellä vastasyntyneiden maidon ruokavalioon. Maitopohjaisten ruokavalioiden optimaaliset OPN-tasot ovat epäselviä, ja äidinmaidon OPN-pitoisuuden vaihtelu on suuri sekä äitien ja maiden välillä että imetyksen aikana [7. Aiemmat eläintutkimukset ovat pääasiassa tutkineet OPN:n lisäämisen vaikutuksia kontrolliruokavalioon ilman OPN:ää tasoilla, jotka ovat verrattavissa ihmisen maidon keskimääräiseen pitoisuuteen [14,22,24]. Tässä prekliinisessä sikatutkimuksessa keskityimme kliinisesti merkitykselliseen näkökohtaan lisätä OPN:ää ruokavalioon, jossa on perus-OPN-taso korkean äidinmaidon tason saavuttamiseksi. Tässä tutkimuksessa OPN-lisä lisäsi OPN:n päivittäistä annosta annokseen, joka vastaa imeväisten saantia äideiltä, joiden OPN-maidon pitoisuus oli suhteellisen korkea, ja paljon enemmän kuin mitä normaalisti äidinmaidonkorvikkeella saadaan[4]. Kerätyn Jersey-maidon OPN-pitoisuus osoittautui korkeammaksi kuin aiemmin naudanmaidosta mitattu. On tärkeää huomata, että käytetty LC-MS/MS-menetelmä eroaa aiemmissa tutkimuksissa käytetystä ELISA-menetelmästä [48]. Kognitiivisten vaikutusten puute nykyisessä tutkimuksessa saattaa johtua siitä, että kontrolliporsaat saavat jo OPN:ää pitoisuuksina 91 mg/l, koska se on luonnostaan läsnä Jerseyn maidossa, eikä ylimääräinen OPN-lisä anna lisäetuja. Havaitsimme, että naudanmaidon täydentäminen OPN:llä oli hyvin siedettyä ja sillä oli vähäisiä vaikutuksia suoliston ja immuunijärjestelmän kypsymiseen, kun taas aivojen rakenteelliset ja toiminnalliset parametrit pysyivät muuttumattomina. Sekä OPN- että CON-porsaiden kasvunopeus oli verrattavissa tai korkeampi kuin mitä normaalisti havaitaan ennenaikaisilla porsailla samanlaisissa tutkimuksissa naudanmaitoruokavaliolla [49-51]. Näissä keskosissa saavutetut kasvunopeudet ja suhteellisen hyvä kliininen tila alhaisilla NEC-pisteillä tarjosivat optimaaliset olosuhteet dokumentoida ruokavalion vaikutukset elinten toimintojen muutoksiin ja aivojen kognitiiviseen kehitykseen herkillä vastasyntyneillä.

Ihmisen, lehmän ja sian OPN-sekvenssit ovat hyvin samankaltaisia [52], ja OPN:n kaikkialla esiintyvä luonne on vakiintunut sioilla. OPN ilmentyy useissa terveissä sian kudoksissa, eniten ileaalikudoksessa [53], mutta sianmaidon pitoisuuksia ei tunneta. Olemme aiemmin osoittaneet OPN-rikastetun kaavan vähäisiä hyödyllisiä suolistovaikutuksia ennenaikaisilla porsailla suhteessa synnytystä edeltävästä tulehduksesta toipumiseen [43]. Yhdessä tämä korostaa porsaan käyttöä prekliinisenä mallina OPN-ravintolisän vaikutusten tutkimiseksi. Suhteessa CON:iin OPN-sioilla oli korkeampi villus-to-crypt-suhde ohutsuolessa. Samanlainen morfologinen ero ilmoitettiin perustuen pohjukaissuolenäytteisiin 10-vuorokauden ikäisistä hiirenpennuista, joita imettivät villityypin emät tai OPN-poistoemot, joita oli täydennetty naudanmaidon OPN:lla, verrattuna hiiren pentuihin, jotka eivät saaneet mitään OPN:ää[22]. Aiemmat ennenaikaiset sikojen tutkimukset ovat korreloineet kohonneet villuskorkeudet parantuneeseen ravinteiden, esim. galaktoosin, absorptiokykyyn [51,54], mikä voi olla kriittistä optimaalisen kasvun varmistamiseksi. Sian IPEC-J2-solulinjaa käyttämällä olemme aiemmin osoittaneet in vitro OPN:n kyvyn lisätä solujen lisääntymistä annoksesta riippuvaisella tavalla [43]. Nykyisessä tutkimuksessa OPN-sioilla havaittua parantunutta suoliston limakalvon rakennetta ei voitu selittää proliferatiivisten enterosyyttien lisääntymisellä ohutsuolen Ki-67-värjäytymisen perusteella, eikä se johtanut ruoansulatusentsyymien toiminnan muutoksiin. Aiemmat löydökset OPN-täydennettyjen vastasyntyneiden reesusapinoiden kohdalla ovat osoittaneet, että suoliston muutokset jejunaalisten geenien ilmentymisprofiilien kanssa ovat samankaltaisempia kuin rintaruokittujen vastineiden [12]. OPN- ja CON-sioissa havaittiin sama kehityskulku, joka koskee immuunisolujen määrää. Kaikkien immuunisolujen, paitsi basofiilien ja eosinofiilien määrät, joilla on yhtä alhainen taso iäkkäillä porsailla [34], määrä kasvoi päivästä 8 päivään 19, mikä osoittaa molempien ryhmien parantuneen kyvyn saada riittävä immuunivaste potentiaaliselle patogeenille. OPN-sikojen kiertävien monosyytti- ja lymfosyyttitasot päivänä 8 olivat korkeammat verrattuna CON-sioihin, mutta eivät päivänä 19. Koska kliininen tila oli molemmissa ryhmissä samanlainen ja NEC-pisteet alhaiset, monosyytti- ja lymfosyyttitasot liittyvät todennäköisesti pääasiassa hoitoon. vaikutuksia ja viittaavat immuunijärjestelmän nopeutumiseen OPN-sioissa. Suurempi määrä kiertäviä monosyyttejä havaittiin myös satunnaistetussa kontrolloidussa tutkimuksessa kuuden kuukauden ikäisillä vauvoilla, jotka saivat äidinmaidonkorviketta, johon oli lisätty naudanmaitoa OPN-pitoisuuksina 65 mg/l ja 135 mg/l, verrattuna rintaruokittuihin kontrolleihin [55]. OPN pystyy olemaan vuorovaikutuksessa immuunisolujen kanssa reseptorinsa kautta ja toimimaan kemotaktisena aineena IL-1--aktivoituneille monosyyteille, mikä voi olla fysiologisesti merkityksellistä tulehduksen aikana [16]. OPN:llä voi lisäksi olla rooli synnynnäisessä immuniteetissa välittämällä fagosytoosia integriinireseptorin, ox 2:n, kautta, joka ilmentyy monosyyttien pinnalla [16]. Lisätutkimukset, joissa tutkitaan OPN:n roolia monosyyttien toiminnassa ja kuinka tämä vaikuttaa hyödyksi korvikevalmisteella ruokittujen imeväisten kannalta, on vielä tutkimatta.

T-solujen alajoukon karakterisointi suoritettiin päivinä 8 ja 19 lymfosyyttipopulaation kuvaamiseksi tarkemmin, mutta se ei paljastanut mitään eroja alaryhmäfraktioissa näiden kahden ryhmän välillä tässä välittömässä vastasyntyneen jaksossa. Imeväislapset, jotka ovat saaneet äidinmaidonkorviketta täydennettynä OPN:llä (65 tai 130 mg/l), ovat osoittaneet lisääntyneen T-solujen osuuden kuuden ensimmäisen elinkuukauden aikana verrattuna ruokitun peruskorvikkeen kanssa [55]. Tätä vastetta ei ehkä kehitetä jo ensimmäisten elinviikkojen aikana, tai naudan perusmaidossamme oleva suhteellisen korkea OPN-taso (91 mg/L) voi rajoittaa lisämuutoksia. T-solujen, auttaja-T-solujen ja sytotoksisten T-solujen määrä ei eronnut OPN:n ja CON:n välillä, joten se ei voi selittää eroja kiertävien lymfosyyttien välillä näiden kahden ryhmän välillä päivänä 8. Tässä tutkimuksessa värjäsimme CD3:lle, CD4, CD8 ja Foxp3, ja on vielä tutkittava, voisiko korkeampi lymfosyyttien määrä johtua korkeammasta B-solumäärästä tai lisääntyneestä luonnollisten tappajasolujen määrästä. Systeeminen immuniteetin kypsyminen syntymän jälkeen sisältää muutoksen Th1/Th2-tasapainossa, jolloin puolustus bakteeri-infektioita vastaan vaatii Th1-vinoutumista [17]. OPN on voimakas kemoattraktantti, jolla on sytokiinien kaltaisia ominaisuuksia ja jonka tiedetään säätelevän Th1/Th2-tasapainoa [18]. Tässä tutkimuksessa ruokavalio ei muuttanut Th1/Th2-tasapainoa pian syntymän jälkeen, mikä osoitti samanlaisen TNF-/IL10-suhteen päivänä 8. Koska TNF-o-tasoja ei havaittu stimuloimattomissa plasmanäytteissä päivästä 19, TNF-/IL10 suhdetta ei tässä vaiheessa voitu laskea. Äskettäin eläinmalleilla [14, 22, 24] tehdyissä tutkimuksissa on tutkittu maidon OPN:n roolia hermoston kehityksessä vauvaiässä. OPN-knockout-hiirimallia käyttämällä maidon, jonka OPN-tasot ovat samankaltaisia kuin äidinmaitoa, on osoitettu parantavan motoristen taitojen ja hippokampuksesta riippuvaisten muistikykyjen kehitystä 30-vuorokauden ikäisillä hiirenpennuilla verrattuna ravinnon OPN-puutteisiin verrokkeihin. Nämä ravinnon maitoon liittyvän OPN:n toiminnalliset aivotulokset yhdistettiin lisääntyneisiin endogeenisten aivojen OPN-tasoihin ja hermo/glia-antigeenin kaksi solujen korkeampaan proliferaatioon ja erilaistumiseen oligodendrosyyteiksi, mikä johti myeliiniin liittyvien proteiinien lisääntyneeseen ilmentymiseen. Samanlaisessa kokeellisessa järjestelyssä villin tyypin hiirenpennut, joita imetsivät OPN-poistoemot ja joille annettiin naudanmaitoa OPN (12 ug/g), osoittivat paremman muistin kuin täydentämättömät kontrollit [22]. Yhdessä nämä tulokset osoittavat, että maidon OPN:llä on tärkeä rooli neurokognitiivisessa kehityksessä ja että naudanmaidon OPN:llä voi olla tällaisia hyödyllisiä vaikutuksia eri lajeihin. Löysimme samanlaista kehitystä motoristen perustaitojen hankkimisessa, kotihäkkitoiminnassa ja tutkimuskäyttäytymisessä avokenttäareenalla ryhmien välillä. Ryhmäsuoritukset spatiaalisessa T-labyrintitestissä osoittivat lisäksi samankaltaista hippokampuksesta riippuvaa oppimista ja muistia ja siten kognitiivisia kykyjä. Tuloksemme ovat äskettäin tehdyn tutkimuksen mukaisia, jossa verrattiin kahden päivän ikäisiä porsaita, jotka saivat soijaproteiinipohjaista rehuruokaa, joka ei sisältänyt OPN:ää tai jota oli täydennetty 250 mg/l naudanmaidolla OPN [24]. Vain rajalliset käyttäytymiserot havaittiin kahden ryhmän välillä, jotka arvioitiin uuden esineiden tunnistustehtävän aikana, joka suoritettiin syntymän jälkeisenä päivänä 30. Tämä tarkoittaa, että ainakaan terveillä, aikaisin syntyneillä sioilla OPN-maidon lisäys ei edelleenkään paranna aivoihin liittyvää kehitystä mitattuna uudenlaisen esineen tunnistus. Samoin kuin spatiaalinen T-sokkelotesti [44], uutta esineiden tunnistustehtävää pidetään hippokampuksesta riippuvaisena, ja siksi nämä käyttäytymistestit voivat olla herkempiä lähempänä hippokampuksen maksimikasvun ajankohtaa, jota esiintyy uros- ja naarassioilla. suunnilleen synnytyksen jälkeisellä viikolla 8 ja 3 [56]. Ei tiedetä, olisiko pitkäaikainen kognitiivinen parannus maidon OPN-lisäyksen jälkeen varhaisessa iässä, kuten hiirimallitutkimuksissa [14,22] on osoitettu, voitu dokumentoida sioilla myöhemmillä ajankohdilla.


Mitä tulee aivojen rakenteelliseen kehitykseen, aiemmin magneettikuvauksen avulla dokumentoitiin, että ravinnon OPN-lisäys lisäsi aivojen alueellisten tilavuuksien määrää normalisoitumisen jälkeen aivojen kokonaistilavuuksiksi [24]. Tässä tutkimuksessa emme löytäneet ruokavalion aiheuttamia eroja aivojen alueellisissa painoissa, emme absoluuttisissa painoissa emmekä suhteessa aivojen kokonaispainoihin. Siksi emme suorittaneet syvällisempää analyysiä, kuten myeliiniin liittyvien proteiinien, esim. myeliinin emäksisen proteiinin ja myeliiniin liittyvän glykoproteiinin, geenin ilmentymistasojen mittaamista [14,23]. Aiemmin on dokumentoitu, että eksogeenisellä OPN:llä on hermostoa suojaavia ominaisuuksia heikentämällä aivoverenvuoto-indusoitua hermotulehdusta, mikä johtaa parantuneisiin neurologisiin pisteisiin [57I. Lisätutkimukset ovat perusteltuja sen selvittämiseksi, pystyykö maito OPN tuottamaan hyödyllisiä rakenteellisia ja toiminnallisia vaikutuksia aivoihin systeemisten tulehdustilojen aikana, joita keskosilla usein esiintyy [26]. Tämä ei kuulunut tämänhetkisen tutkimuksen piiriin.
5. Johtopäätökset
Herkkien vastasyntyneiden keskosten mallissa osoitimme, että bioaktiivinen naudanmaidon ruokavalio, johon on lisätty naudanmaidon OPN, on hyvin siedetty ja aiheutti pieniä parannuksia suoliston rakenteessa ja systeemisessä immuniteetissa ilman, että se vaikuta aivojen rakenteelliseen tai toiminnalliseen kehitykseen. OPN-lisännällä naudan perusmaidosta saatavan annoksen yläpuolella, mikä saavuttaa korkean fysiologisen tason sen, mitä pikkulapset luonnollisesti saavat äidinmaidosta, voi siksi olla rajoitettuja vaikutuksia herkillä vastasyntyneillä välittömästi vastasyntyneiden suolistoon, immuniteettiin ja aivojen kehitykseen. . Lisätietoa naudanmaitopohjaisten äidinmaidonkorvikkeiden maidon OPN-täydennyksen eduista vammautuneiden vastasyntyneiden kehityksen edistämiseksi on vielä selvittämättä.


